
XiaoMi-AI文件搜索系统
World File Search SystemADAR
定量降水估计(QPE)天气雷达使用衰减校正和Z-R关系算法的比率
定量降水估计(QPE)天气雷达在东Java Laode Nodeman的某些部分中使用Z-R关系算法的衰减和比较Z-R关系算法,Retnadi Heru Jatmiko博士,硕士。; Emilya Nurjani博士,S.Sc.,M.Sc。
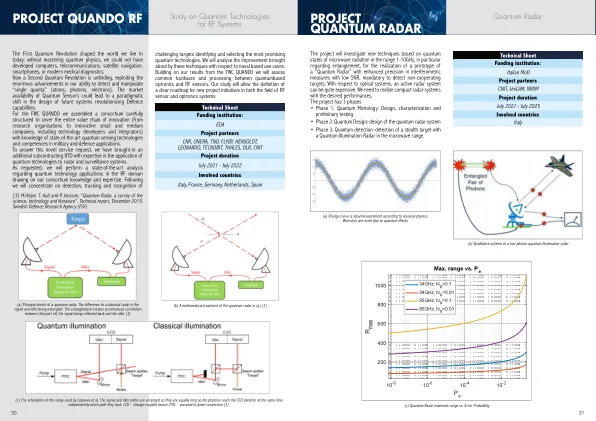
QUANDO RF 项目 量子雷达项目
第一次量子革命塑造了我们今天生活的世界:如果不掌握量子物理学,我们就无法开发计算机,电信,卫星导航,智能手机或现代医学诊断。现在,第二次量子革命正在展开,利用了我们检测和操纵“单量子”(原子,光子,电子)的能力方面的巨大进步。量子传感器的市场可用性可能会导致未来系统的设计范围内的范式转变。对于FWC Quando,我们汇集了一个经过精心构造的财团,以涵盖整个创新的价值链(从研究组织到创新的中小型公司,包括技术开发人员和集成商),了解了先进的量子量子传感技术和军事和国防应用中的先进量子传感技术和能力。为了回答这个新颖的服务请求,我们在将量子技术应用于雷达和监视系统方面具有专业知识带来了另外的分包RTO。根据要求,我们将对RF域中的量子技术应用进行最新分析,以利用我们的财团知识和专业知识。之后,我们将集中精力进行检测,跟踪和识别

量子雷达:新兴遥感技术的现状与潜力
摘要 — 量子技术已在信息处理和通信等许多领域得到应用,它有可能改变我们在微波和毫米波领域的遥感方法,从而产生被称为量子雷达的系统。这种新一代系统并不直接利用量子纠缠,因为后者太“脆弱”,无法像雷达场景那样在嘈杂和有损的环境中保存,而是利用量子纠缠产生的高水平相干性。量子照明是一种利用非经典光态的量子相干性进行遥感的过程。它允许以光学或微波光子的形式生成和接收高度相关的信号。通过将接收到的信号光子与与发射光子纠缠的光子相关联,可以在所有接收到的光子中清楚地区分回声与背景噪声和干扰,从而将遥感的灵敏度提高到前所未有的水平。因此,原则上可以检测到非常低的交叉雷达截面物体,例如隐形目标。目前,关于量子雷达收发器的实验报道很少。本文旨在总结量子雷达的最新进展,介绍其基本工作原理,并提出这种技术可能出现的问题;其次,本文将指出光子学辅助量子雷达的可能性,并提出光子学是量子科学和遥感技术可以有效相互融合的理想领域。

无人机安装的雪雷达系统
摘要:机载地面穿透雷达系统提供了一种安全且效率的方法,可在挑战性地形中测量雪深和积雪地层,并具有潜在的雪崩危险。雪花龙是一种定制的雪测量系统,其中包含一个未螺旋的航空车辆(UAV)平台和雷达有效载荷。专门设计用于在各种雪覆盖场景上进行雪调查,该系统具有针对此类任务的性能属性。在这里,我们介绍了完整系统的技术实施,再加上在Svalbard上进行的三个广泛的现场活动的验证结果。此外,我们还提供了对雪地无人机获得的雪地层测量结果的见解,并原位获得了雪轮剖分以进行比较分析。通过将雷达观测值与1673的共同位置测量降雪深度相关联,范围从5到200 cm,并揭示了高度的一致性,从而产生了r = 0.938的相关系数。雪花源是可靠有效的工具,可在坡度范围内协助当地的雪崩危险评估,其中有关积雪深度和结构的信息至关重要。

利用活细胞中的 ADAR 编辑进行模块化和可编程的 RNA 传感
随着单细胞转录组的可用性不断提高,RNA 特征为靶向活细胞提供了有希望的基础。分子 RNA 传感器将能够在不同情况下研究和治疗干预特定细胞类型/统计数据,特别是在人类患者和非模型生物中。在这里,我们描述了一种使用作用于 RNA 的腺苷脱氨酶 (RADAR) 进行活体 RNA 传感的模块化和可编程设计。我们验证并扩展了我们的基本设计,表征了其性能,并彻底分析了其与人类/小鼠转录组的兼容性。我们还确定了进一步提高输出水平和改善动态范围的策略。我们表明 RADAR 是可编程和模块化的,并且独特地支持紧凑的 AND 逻辑。除了定量之外,RADAR 还可以区分与疾病相关的点突变。最后,我们证明 RADAR 是一个独立的系统,具有在各种生物体中发挥作用的潜力。
反义 RNA 上的 ADAR RNA 编辑导致重叠正义转录本上出现明显的 U 到 C 碱基变化
尽管迄今为止已描述了数百种 RNA 修饰,但只有 RNA 编辑会导致 RNA 分子的核苷酸序列与基因组相比发生变化。在哺乳动物中,迄今为止已描述了两种 RNA 编辑,即腺苷到肌苷 (A-to-I) 编辑和胞苷到尿苷 (C-to-U) 编辑。RNA 测序技术的最新改进导致发现越来越多的编辑位点。这些方法功能强大但并非没有错误,因此必须对新描述的编辑位点进行常规验证。在对 DDX58 mRNA 进行其中一次验证时,除了 A-to-I RNA 编辑位点外,我们还遇到了假定的 U-to-C 编辑。这些 U-to-C 编辑存在于几种细胞系中,并且似乎受到特定环境刺激的调节。在人类长基因间非编码 RNA p21 (hLincRNA- p21) 中也观察到了同样的发现。更深入的分析表明,假定的 U-to-C 编辑是由从相同基因座转录的重叠反义 RNA 上的 A-to-I 编辑引起的。此类编辑事件发生在以相反方向转录的重叠基因上,最近已被证明具有免疫原性,并与自身免疫和免疫相关疾病有关。我们的发现也得到了深度转录组数据的证实,表明此类基因座可以通过同一基因座内 A-to-I 和 U-to-C 错配的存在来识别,在正义转录本和顺式天然反义转录本 (cis-NAT) 中都存在反射性 A-to-I 编辑,这意味着此类簇可能是功能相关的 ADAR1 编辑事件的标志。

牡蛎疱疹病毒 1 感染期间的 ADAR 编辑:事实与局限性
摘要 在感染巨牡蛎 (Crassostrea gigas) 的过程中,牡蛎疱疹病毒 1 (OsHV-1) RNA 会通过 A 到 I 的转化进行酶促修饰。与 OsHV-1 RNA 平行的 ADAR1 表达和超编辑活性的增加表明 dsRNA 编辑与抗病毒反应之间存在功能性联系。我们分析了 87 个 RNA 测序数据集,这些数据集来自暴露于 OsHV-1 的免疫致敏、抗性和易感牡蛎,以比较宿主和病毒转录本上的 ADAR 超编辑水平并追踪牡蛎基因上的超编辑。尽管在感染后期病毒 RNA 的编辑有所增加,但宿主 RNA 比病毒 RNA 更容易发生超编辑。一组占牡蛎转录组 0.5% 的基因(包括几个含三部分基序的序列)不断被超编辑。相反,我们鉴定出参与抗病毒反应、miRNA 成熟和表观遗传调控的基因,这些基因仅在特定条件下被过度编辑。尽管技术和生物学瓶颈阻碍了对双壳类“RNA 编辑组”的理解,但现有的工具和技术可以适用于双壳类软体动物。

ADAR基因
参考文献 • Crow YJ。Aicardi-Goutieres 综合征。2005 年 6 月 29 日 [2016 年 11 月 22 日更新]。引自:Adam MP、Feldman J、Mirzaa GM、Pagon RA、Wallace SE 和 Amemiya A,编辑。GeneReviews(R) [Internet]。西雅图 (WA):华盛顿大学,西雅图;1993 - 2025 年。可从 http://www.ncbi.nlm.nih.gov/books/NBK1475/ PubMed 引文获取 (https://pubmed.ncbi.nlm.nih.gov/20301648) • Fisher AJ、Beal PA。根据 ADAR-RNA 结构预测 Aicardi-Goutieres 综合征突变的影响。RNA Biol。2017 年 2 月;14(2):164-170。 doi:10.1080/15476286。2016.1267097。2016 年 12 月 12 日电子版。PubMed 上的引用(https://pubmed.ncbi.nlm.nih .gov/27937139)或 PubMed Central 上的免费文章(https://www.ncbi.nlm.nih.gov/pm c/articles/PMC5324757/)• Hayashi M、Suzuki T。遗传性对称性色素异常。J Dermatol。2013 年 5 月;40(5):336-43。doi: 10.1111/j.1346-8138.2012.01661.x。 Epub 2012 年 9 月 14 日。PubMed 上的引用 (https://pubmed.ncbi.nlm.nih.gov/22974014) • Heraud-Farlow JE、Walkley CR。ADAR1 的 RNA 编辑在预防自身 RNA 的先天免疫感应中的作用。J Mol Med (Berl)。2016 年 10 月;94(10):1095-1102。doi: 10.1007/s00109-016-1416-1。Epub 2016 年 4 月 5 日。PubMed 上的引用 (https://pub med.ncbi.nlm.nih.gov/27044320) • Liddicoat BJ、Chalk AM、Walkley CR。ADAR1、肌苷和免疫感应系统:区分自身和非自身。Wiley Interdiscip RNA 综述。 2016 年 3 月至 4 月;7(2):157-72。doi:10.1002/wrna.1322。2015 年 12 月 21 日电子版。PubMed 上的引用(https://pubmed.ncbi.nlm.nih.gov/26692549)• Pestal K、Funk CC、Snyder JM、Price ND、Treuting PM、Stetson DB。RNA 编辑酶 ADAR1 的同工型独立控制核酸传感器 MDA5 驱动的自身免疫和多器官发育。免疫。2015 年 11 月 17 日;43(5):933-44。doi:10.1016/j.immuni.2015.11.001。 PubMed 上的引用 (https://pubmed.ncbi .nlm.nih.gov/26588779) 或 PubMed Central 上的免费文章 (https://www.ncbi.nlm.nih.gov/pmc/articles/PMC4654992/) • Rice GI、Kasher PR、Forte GM、Mannion NM、Greenwood SM、Szynkiewicz M、Dickerson JE、 Bhaskar SS、Zampini M、Briggs TA、Jenkinson EM、Bacino CA、BattiniR、Bertini E、Brogan PA、Brueton LA、Carpanelli M、De Laet C、de Lonlay P、delToro M、Desguerre I、Fazzi E、Garcia-Cazorla A、Heiberg A、Kawaguchi M、Kumar R、Lin JP、Lourenco CM,男AM,马克斯·W Jr、Mignot C、Olivieri I、Orcesi S、Prabhakar P、Rasmussen M、Robinson RA、Rozenberg F、Schmidt JL、Steindl K、TanTY、van der Merwe WG、Vanderver A、Vassallo G、Wakeling EL、Wassmer E、

adar1(e1008q),标志标准重组
描述:重组人全长ADAR1(腺苷脱氨酶,RNA特异性1)转录本1,包含氨基酸2-1226(END)。该蛋白质包含感兴趣的突变E1008Q。此构造包含一个N末端标记标签。重组蛋白具有亲和力纯化。背景:ADAR1(腺苷脱氨酶,RNA特异性1)对RNA中的腺苷进行腺苷进行腺苷,尤其是针对位于特定茎环基序结构中的腺苷。有人提出,ADAR进化为为转录组提供额外的多样性,而大多数ADAR编辑事件发生在非编码RNA中,但其中一些(包括规范GLUA2编辑位点)改变了编码蛋白的氨基酸序列。adar1通过缓解干扰素信号传导在先天免疫中起作用。ADAR1功能障碍会导致自身免疫性疾病,并影响癌细胞的生长和增殖以及对免疫疗法的肿瘤反应。由于ADAR识别双链RNA,因此抑制或修饰RNA病毒的功能也起作用。因此,它与病毒进化和病毒变体(例如SARS-COV-2变体)的出现有关。已经提出了ADAR1的E1008Q突变体比其野生型具有更高的编辑活性,其突变存在于蛋白质的脱氨酶结构域中的高度保守的谷氨酸盐中。物种:人类结构:ADAR1(E1008Q)(FLAG-2-1226(END))浓度:0.39 mg/ml表达系统:HEK293纯度:80%格式:水缓冲液溶液。MW:137 KDA GenBank登录:NM_001111稳定性:-80°C至少6个月。以:50 mM Tris-HCl,pH 8.0、750 mm NaCl,0.01%Triton X-100、10%甘油和100μg/ml的FLAG肽。存储:-80°C使用的说明:在冰上解冻,并在使用前轻轻混合。不要涡旋。在打开前进行快速旋转。等分的小容量,然后闪烁冻结以进行长期存储。避免多个冻结/解冻周期。测定条件:根据ADAR1:RNA TR-FRET分析套件(#82252)进行测定,具有不同量的ADAR1(E1008Q),FLAG-TAG重组(#102535)。应用程序:

adar1- ...
1美国莱斯大学,莱斯大学,美国德克萨斯州休斯敦市,77005,美国2个神经循环中心,休斯敦卫理公会研究所神经外科部,德克萨斯州休斯敦77030,美国休斯敦3美国神经外科部,休斯敦神经病学研究所,休斯敦,莫尔·莫尔·莫尔斯和莫尔斯莫尔斯莫尔斯卫生部,药理学,贝勒医学院,德克萨斯州休斯敦市贝勒医学院77030,美国5 Nextgen Therapeutics,贝勒医学院,休斯敦,休斯敦,德克萨斯州77030,美国6分子和蜂窝生物学系,贝勒医学院,休斯敦,休斯敦,德克萨斯州77030,德克萨斯州77030,美国77030,美国7领导人联系: