
XiaoMi-AI文件搜索系统
World File Search System运动神经元
您将再次掌握:脊髓/计算机与保留的运动神经元的直接接口可恢复慢性脊髓损伤后瘫痪手的灵巧控制
图 1 | a. 实验装置由放置在前臂肌肉中的 320 个表面 EMG 电极组成。运动指令由受试者前方的显示器上显示的虚拟手视频引导。b. 一些示例电极显示受试者尝试抓握任务(手指屈伸,0.5Hz)时的原始 HDsEMG 信号。c. 基于运动单元动作电位均方根值的空间映射示例。d. 在两指捏合任务的 10 秒内识别的运动单元激发(颜色编码)的光栅图。e. 使用因式分解分析为同一任务提取的神经模块。f. 具有两个神经模块的各个运动单元的 Pearson 相关值 (r)。g. 在所有任务和受试者中识别的运动单元 (MU) 数量(每个点代表一个受试者)。h. 两个神经模块(M1 - 蓝色和 M2 - 红色)解释方差的百分比,在所有受试者中平均。

营养不良性肌肉影响运动神经元轴突生长和 NMJ 组装
神经肌肉接头 (NMJ) 处的化学突触呈现出一种复杂的结构,其形成取决于两个主要因素的相互诱导:脊髓运动神经元和骨骼肌纤维。这种微妙平衡的破坏是许多神经肌肉疾病的根源,其细胞和分子机制仍有部分未知。这种病理生理学相关性引起了许多研究小组对开发有效研究模型的浓厚兴趣:几十年来,动物模型,尤其是小鼠,一直是神经肌肉疾病建模的黄金标准。[1] 总体而言,动物模型捕捉到了人类疾病的重要特征,因此对于了解器官和生物体规模的疾病进展非常有价值。然而,将这一发现充分应用于人类病理生理学的临床

针对突变的超氧化物歧化酶1的星形胶质细胞靶向RNA干扰1诱导运动神经元可塑性,并在肌萎缩性侧面硬化症的小鼠模型中保护快速效能的运动单元
图1 AAV-MIR SOD1靶向星形胶质细胞的靶向神经肌肉功能。神经肌肉功能。(a)纵向实验的模式,指示分析时间点。(b)记录在三头肌中记录的诱发复合肌肉动作电位(CMAP)的幅度。请注意,在第45天至66天之间,未处理和AAV-MIR CTRL注射SOD1 G93A小鼠的CMAP振幅的迅速下降。从第73天开始,AAV-MIR SOD1处理组中的CMAP值进行了逐步拯救。(c)网格测试用于评估四肢的强度。请注意,从第86天开始,未处理和AAV-MIR CTRL注射的SOD1 G93A小鼠的分数显着下降。在AAV-MIR SOD1处理的小鼠中观察到肌肉强度的显着拯救。B和C的统计分析:双向ANOVA(X组时间)重复测量通过Bonferroni事后检验; *** p <.001。 (D)在Rotarod测试中测量电动机协调。 请注意,从第75天开始,ALS小鼠的性能逐渐丧失。 AAV-MIR SOD1从第117天开始引起电动机协调的晚期改进。 统计分析:与Newman的单向方差分析 - KEULS事后测试; * p <.05,** p <.01。 数据代表平均值±SEM。 n =每组12只小鼠B和C的统计分析:双向ANOVA(X组时间)重复测量通过Bonferroni事后检验; *** p <.001。(D)在Rotarod测试中测量电动机协调。请注意,从第75天开始,ALS小鼠的性能逐渐丧失。AAV-MIR SOD1从第117天开始引起电动机协调的晚期改进。统计分析:与Newman的单向方差分析 - KEULS事后测试; * p <.05,** p <.01。数据代表平均值±SEM。n =每组12只小鼠
运动神经元疾病 - 氨基卫星侧硬化
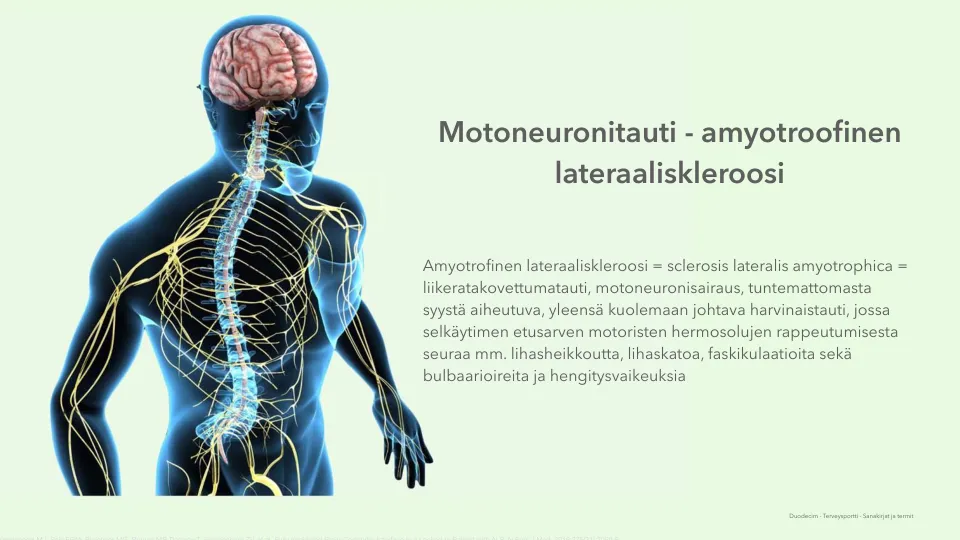
肌萎缩性侧面硬化症=硬化症latetrophica =商业胎面胎面,运动神经元疾病,未知的稀有疾病,通常是由于未知的死亡原因,脊髓中运动神经细胞的退化。肌肉无力,肌肉丧失,迷人,鳞茎症状和呼吸困难

加速运动神经元治疗的研究...
对MND的了解在过去的5年中一直在加速,英国有机会利用这些新知识,在新途径,药物目标和确保最先进的疗法上首先交付给英国MND的人。在英国政府支持5000万英镑的支持下,英国MND研究所最终将能够利用行业的内向投资用于管道中的每种新药,因为典型的药物开发费用超过了每名药物的5亿英镑;最初的发展可以在5年的时间范围内开始。没有投资,行业将向欧洲和美国的其他合作伙伴展望。

通过终端选择器功能中的时间模块化运动神经元身份的建立和维护
摘要在胃肠道中,神经rest细胞在神经板边界处指定为PAX7表达。使用单细胞RNA测序与高分辨率原位杂交结合以识别新型的转录调节剂,我们表明染色质重塑剂HMGA1在规格之前高度表达并保持在迁移的鸡神经trest细胞中。暂时控制的CRISPR-CAS9介导的敲除在神经Crest发育中发现了HMGA1的两个不同功能。在神经板边界,HMGA1调节依赖PAX7的神经rest谱系规范。在移民阶段,第二个角色表现出HMGA1损失减少了独立于PAX7的背神经管的颅顶移民。有趣的是,这是通过稳定的ß-catenin挽救的,因此将HMGA1作为规范WNT激活剂。一起,我们的结果表明,HMGA1在神经Crest发育过程中以双峰方式起作用,以调节神经板边界的规范,然后通过规范WNT信号传导从神经管中移民。

终端选择器阻止 Hox 转录开关,从而在整个生命过程中保护运动神经元的身份
摘要 为了发挥和保持功能,单个神经元类型必须在发育过程中选择并在整个生命过程中保持其独特的终端身份特征,例如特定神经递质受体、离子通道和神经肽的表达。在这里,我们报告了一种分子机制,该机制使秀丽隐杆线虫腹侧神经索中的胆碱能运动神经元 (MN) 能够选择并保持其独特的终端身份。该机制依赖于保守的终端选择器 UNC-3 (Collier/Ebf) 的双重功能。UNC-3 与 LIN-39 (Scr/Dfd/Hox4-5) 协同作用,直接共同激活胆碱能 MN 特有的多种终端身份特征,但也拮抗 LIN-39 激活替代神经元身份终端特征的能力。unc-3 的缺失会导致 LIN-39 转录靶标发生转换,从而激活替代的(非胆碱能 MN 特有的)终端特征并出现运动缺陷。终端选择器阻止转录转换的策略可能构成整个生命过程中保护神经元身份的一般原则。