
XiaoMi-AI文件搜索系统
World File Search SystemssDNA

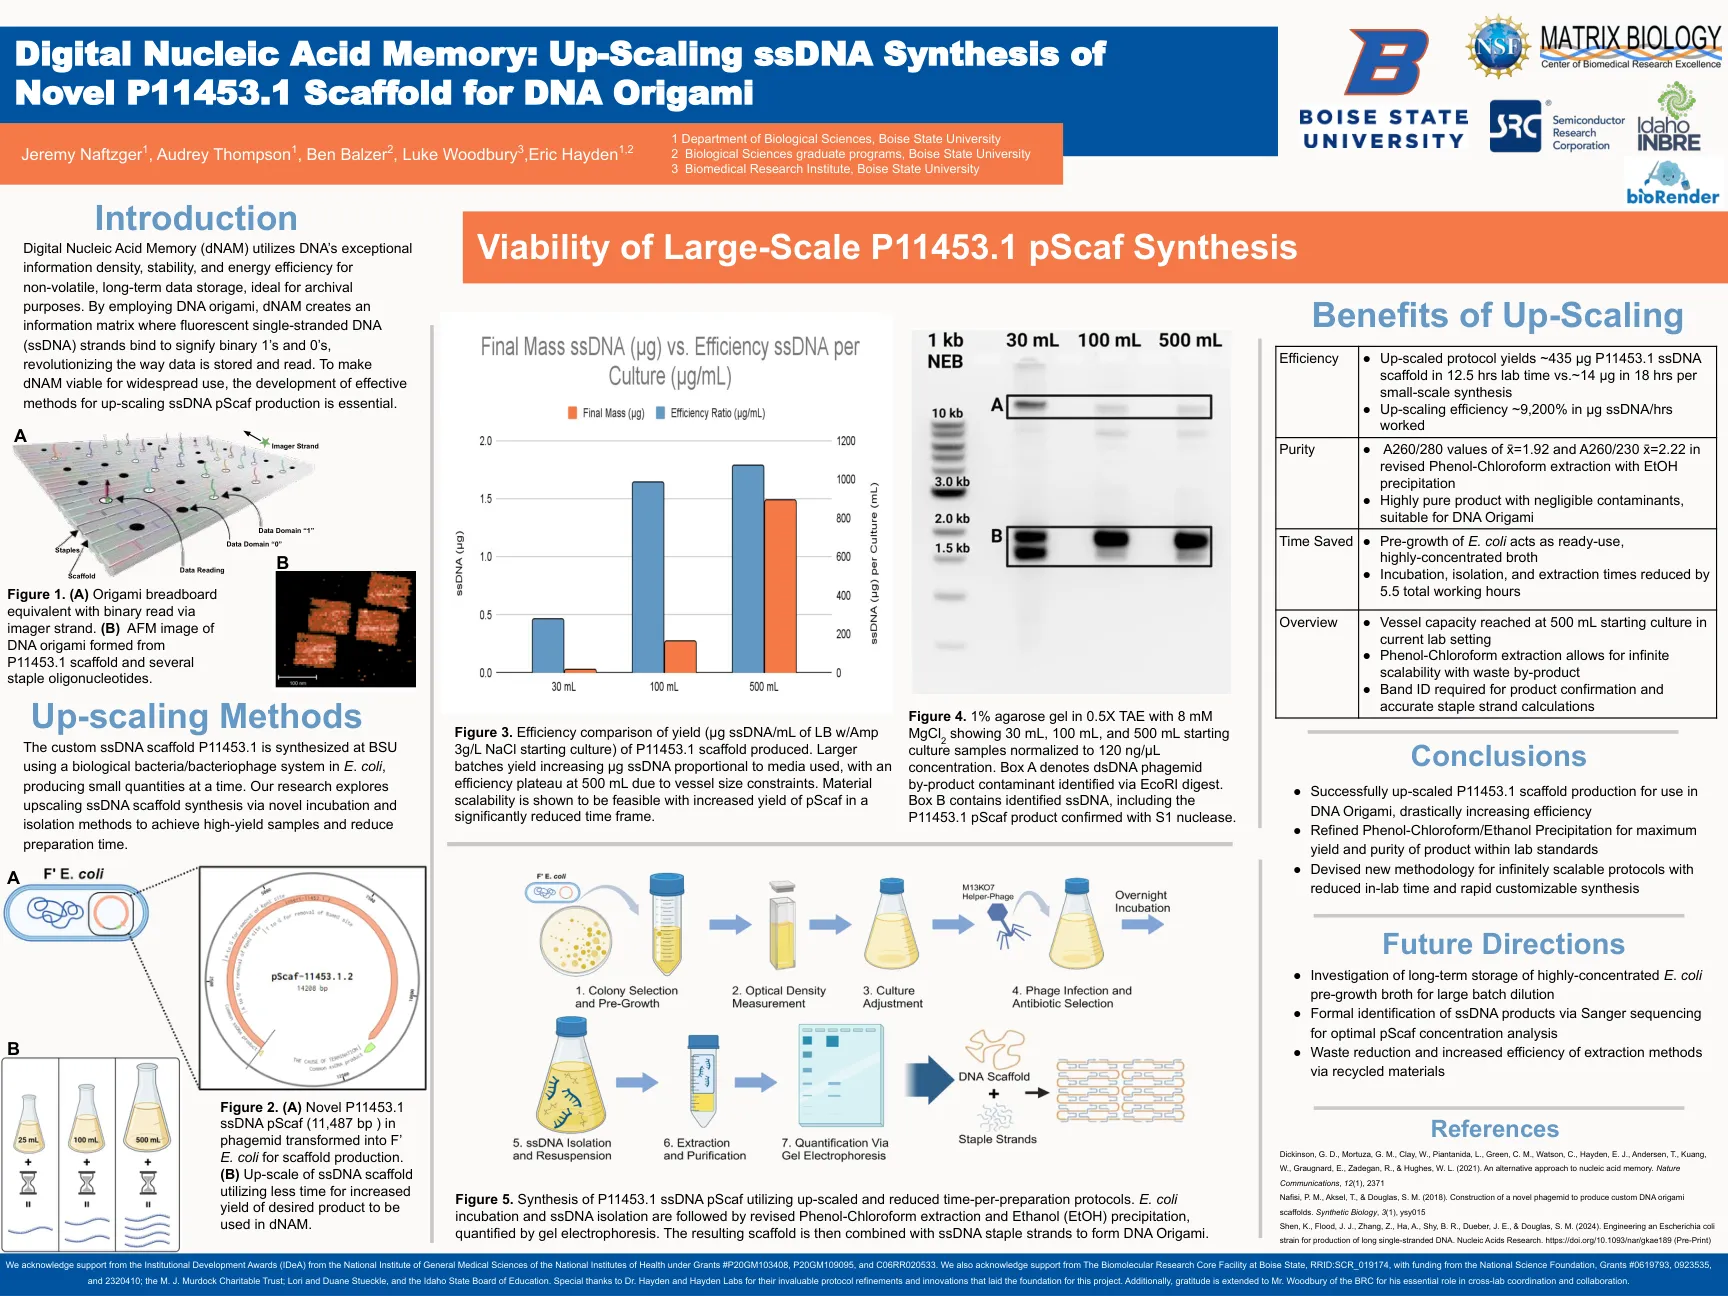
数字核酸记忆:新型P11453.1 DNA折纸的脚手架的缩放ssDNA合成
数字核酸记忆(DNAM)利用DNA的非挥发性,长期数据存储的DNA的特殊信息密度,稳定性和能源效率,非常适合档案目的。通过使用DNA折纸,DNAN创建了一个信息矩阵,其中荧光单链DNA(SSDNA)链结合以表示二进制1和0,从而革新了数据存储和读取的方式。使DNAM适用于广泛使用,开发了提高SSDNA PSCAF生产的有效方法是必不可少的。

exo1和DNA2介导的ssDNA间隙扩展对于ATR激活和维持BRCA1缺陷细胞的生存力至关重要。
抽象的DNA复制面临着源自内源性或E X强度来源的DNA病变的挑战,导致单链DNA(SSDNA)的积累,从而触发了Atr c Hec Kpoint响应的激活。为在存在受损的DNA的情况下完成基因组复制,细胞采用DNA损伤耐受机制,不仅在停滞的复制叉上运行,而且在ssDNA间隙下,源自病变下游DNA合成的SSDNA间隙。在这里,我们证明了人类细胞积累了复制后的ssDNA间隙。t hese间隙,由远程切除exo1和dna2引起了b y p rimpol谴责,并构成了与失速的叉子相比,ssDNA信号的主要起源是负责复制应力的ATR激活的主要起源。引人注目的是,当与BRCA1缺乏症结合使用时,EXO1或DNA2的丢失会导致合成致死性,但不能导致BR Ca2。他的现象与仅BRCA1仅有助于ssDNA间隙的扩展的观察结果一致。非常明显的是,BRCA1缺陷型细胞会上瘾Exo1,DNA2或BLM的Xpression。他对Br Ca1突变肿瘤的远距离切除术的依赖,从而阐明了这些癌症的潜在治疗靶标。
IDT 使用 Alt-R CRISPR-Cas9 系统和 Megamer ssDNA 片段进行同源定向修复 (RUO21-0293_003 03/24)
* 我们保证针对人类、小鼠、大鼠、斑马鱼或线虫基因的预设计 gRNA 的性能。对于其他物种,您可以使用我们的专有算法来设计定制 gRNA。如果您有自己的或来自出版物的 gRNA 原型间隔物设计,请使用我们的设计检查工具评估它们的靶向和脱靶潜力,然后再订购使用我们的 Alt-R gRNA 修饰合成的 gRNA。有关预设计 gRNA 保证的详细信息,请参阅 www.idtdna.com/CRISPR-Cas9。

新型抗危机辅助CRISPR生物传感器,用于独家检测单链DNA(ssDNA)
摘要:核酸分析在疾病诊断和治疗中起重要作用。CRISPR技术的发现为检测核酸的检测提供了新颖而多功能的方法。但是,使用最广泛的CRISPR-CAS12A检测平台缺乏将单链DNA(ssDNA)与双链DNA(DSDNA)区分开的能力。为了克服这一局限性,我们首先采用了抗Crispr蛋白(ACRVA1)来开发一种新型的CRISPR生物传感器,以专门检测ssDNA。在这种传感策略中,ACRVA1切割CRISPR指南RNA(CRRNA)抑制CRISPR-CAS12A系统的裂解活性。只有ssDNA具有募集裂解的crRNA片段以恢复CRISPR-CAS12生物传感器的检测能力,但DSDNA无法实现这一目标。通过测量CRISPR-CAS12A生物传感器的回收裂解活性,我们开发的ACRVA1辅助CRISPR生物传感器能够将ssDNA与dsDNA区分开,为检测SSDNA的检测提供了一种简单可靠的方法。此外,我们证明了我们开发的ACRVA1辅助CRISPR生物传感器,以监测解旋酶的酶促活性并筛选其抑制剂。关键字:基于CRISPR的生物传感器,CAS12A(CPF1)核酸酶,抗Crispr蛋白,ACRVA1,单链DNA(SSDNA)

ssDNA/RNA清洁和集中器
产品描述SSDNA/RNA Clean&Eccentator™套件提供了10分钟,可靠的方法,可快速分离,清理和浓度,最多可从双链种类的单个链DNA和/或RNA(例如,基因组DNA)的单个链DNA和/或RNA。此简单过程基于使用唯一的单支无用系统和Zymo-Spin™列技术。单链DNA或RNA(17至200个核苷酸;例如,短转录本,探针,引物)可以使用此试剂盒安全处理和回收。该结果高度浓缩(≥6µL),纯化的DNA/RNA,适用于随后的分子方法,包括PCR,RT/PCR,杂交等。

使用混合ssDNA修复模板和小分子鸡尾酒
✉信件和材料请求应发给Brian R. Shy或Alexander Marson。,Brian.shy@ucsf.edu; Alexander.marson@ucsf.edu。作者贡献B.R.S.,V.S.V.,J.H.E.和A.M.设计了研究。B.R.S.,V.S.V。 和A.H.进行了SSCTS实验。 B.R.S. 和V.S.V. 进行了抑制剂实验。 B.R.S. 和A.H.进行了ORF替换实验。 B.R.S. 和V.S.V. 进行了GMP-兼容的制造实验。 B.R.S.,V.S.V.,J.Y.J.C.,A.T.,J.E.,J.H.E.,T.G.M. 和J.W. 设计和执行了BCMA-CAR实验。 D.N.N进行了HSC实验。 Y.Y.C. 和F.B. 执行了合并的敲入实验。 s.v. 和M.R.M. 进行了γδT细胞实验。 L.Y. 设计并协调了单链DNA修复模板的大规模生产和下游纯化过程。 H.L. 监督ssDNA的监管要求和质量控制方法。 W.G.P. 和C.E.C. 进行了AFM研究。 T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。B.R.S.,V.S.V。和A.H.进行了SSCTS实验。B.R.S. 和V.S.V. 进行了抑制剂实验。 B.R.S. 和A.H.进行了ORF替换实验。 B.R.S. 和V.S.V. 进行了GMP-兼容的制造实验。 B.R.S.,V.S.V.,J.Y.J.C.,A.T.,J.E.,J.H.E.,T.G.M. 和J.W. 设计和执行了BCMA-CAR实验。 D.N.N进行了HSC实验。 Y.Y.C. 和F.B. 执行了合并的敲入实验。 s.v. 和M.R.M. 进行了γδT细胞实验。 L.Y. 设计并协调了单链DNA修复模板的大规模生产和下游纯化过程。 H.L. 监督ssDNA的监管要求和质量控制方法。 W.G.P. 和C.E.C. 进行了AFM研究。 T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。B.R.S.和V.S.V.进行了抑制剂实验。B.R.S. 和A.H.进行了ORF替换实验。 B.R.S. 和V.S.V. 进行了GMP-兼容的制造实验。 B.R.S.,V.S.V.,J.Y.J.C.,A.T.,J.E.,J.H.E.,T.G.M. 和J.W. 设计和执行了BCMA-CAR实验。 D.N.N进行了HSC实验。 Y.Y.C. 和F.B. 执行了合并的敲入实验。 s.v. 和M.R.M. 进行了γδT细胞实验。 L.Y. 设计并协调了单链DNA修复模板的大规模生产和下游纯化过程。 H.L. 监督ssDNA的监管要求和质量控制方法。 W.G.P. 和C.E.C. 进行了AFM研究。 T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。B.R.S.和A.H.进行了ORF替换实验。B.R.S. 和V.S.V. 进行了GMP-兼容的制造实验。 B.R.S.,V.S.V.,J.Y.J.C.,A.T.,J.E.,J.H.E.,T.G.M. 和J.W. 设计和执行了BCMA-CAR实验。 D.N.N进行了HSC实验。 Y.Y.C. 和F.B. 执行了合并的敲入实验。 s.v. 和M.R.M. 进行了γδT细胞实验。 L.Y. 设计并协调了单链DNA修复模板的大规模生产和下游纯化过程。 H.L. 监督ssDNA的监管要求和质量控制方法。 W.G.P. 和C.E.C. 进行了AFM研究。 T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。B.R.S.和V.S.V.进行了GMP-兼容的制造实验。B.R.S.,V.S.V.,J.Y.J.C.,A.T.,J.E.,J.H.E.,T.G.M. 和J.W. 设计和执行了BCMA-CAR实验。 D.N.N进行了HSC实验。 Y.Y.C. 和F.B. 执行了合并的敲入实验。 s.v. 和M.R.M. 进行了γδT细胞实验。 L.Y. 设计并协调了单链DNA修复模板的大规模生产和下游纯化过程。 H.L. 监督ssDNA的监管要求和质量控制方法。 W.G.P. 和C.E.C. 进行了AFM研究。 T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。B.R.S.,V.S.V.,J.Y.J.C.,A.T.,J.E.,J.H.E.,T.G.M.和J.W.设计和执行了BCMA-CAR实验。D.N.N进行了HSC实验。Y.Y.C. 和F.B. 执行了合并的敲入实验。 s.v. 和M.R.M. 进行了γδT细胞实验。 L.Y. 设计并协调了单链DNA修复模板的大规模生产和下游纯化过程。 H.L. 监督ssDNA的监管要求和质量控制方法。 W.G.P. 和C.E.C. 进行了AFM研究。 T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。Y.Y.C.和F.B.执行了合并的敲入实验。s.v.和M.R.M.进行了γδT细胞实验。L.Y. 设计并协调了单链DNA修复模板的大规模生产和下游纯化过程。 H.L. 监督ssDNA的监管要求和质量控制方法。 W.G.P. 和C.E.C. 进行了AFM研究。 T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。L.Y.设计并协调了单链DNA修复模板的大规模生产和下游纯化过程。H.L.监督ssDNA的监管要求和质量控制方法。W.G.P. 和C.E.C. 进行了AFM研究。 T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。W.G.P.和C.E.C.进行了AFM研究。T.L.R.,E.S.,R.Y。 和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。 B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。T.L.R.,E.S.,R.Y。和D.W.进行并分析了Amplicon-Seq,RNA-Seq和ATAC-Seq研究。B.R.S.,V.S.V。 和A.M.用所有作者的输入写了手稿。B.R.S.,V.S.V。和A.M.用所有作者的输入写了手稿。

使用混合 ssDNA 修复模板和小分子混合物在原代细胞中进行高产基因组工程
✉ 通信和材料请求请发送至 Brian R. Shy 或 Alexander Marson.,Brian.Shy@ucsf.edu;Alexander.Marson@ucsf.edu。作者贡献 BRS、VSV、JHE 和 AM 设计了这项研究。BRS、VSV 和 AH 进行了 ssCTS 实验。BRS 和 VSV 进行了抑制剂实验。BRS 和 AH 进行了 ORF 替换实验。BRS 和 VSV 进行了符合 GMP 的制造实验。BRS、VSV、J.-YJC、AT、JE、JHE、TGM 和 JW 设计并进行了 BCMA-CAR 实验。DNN 进行了 HSC 实验。YYC 和 FB 进行了混合敲入实验。SV 和 MRM 进行了 γδT 细胞实验。LY 设计并协调了单链 DNA 修复模板的大规模生产和下游纯化过程。HL 监督了 ssDNA 的监管要求和质量控制方法。WGP 和 CEC 进行了 AFM 研究。 TLR、ES、RY 和 DW 执行并分析了扩增子测序、RNA 测序和 ATAC 测序研究。BRS、VSV 和 AM 在所有作者的帮助下撰写了手稿。

IDT_使用 Alt-R CRISPR-Cas9 系统和 Megamer ssDNA 片段进行同源性定向修复参考指南 (RUO21-0211_002 02/22)
30 多年来,IDT 的创新工具和基因组学应用解决方案一直在推动进步,激励科学家敢于梦想,实现下一个突破。IDT 开发、制造和销售核酸产品,为学术和商业研究、农业、医学诊断和药物开发等领域的生命科学行业提供支持。我们拥有全球业务,提供个性化的客户服务。

ssDNA 纳米管用于选择性靶向胶质母细胞瘤并输送阿霉素以提高生存率
有效治疗胶质母细胞瘤仍然是一项艰巨的挑战。治疗药物开发的主要障碍之一是它们无法穿过血脑肿瘤屏障 (BBTB)。局部给药是一种替代方法,但在缺乏靶标选择性的情况下仍可能产生毒性。在这里,我们展示了由 ssDNA 两亲分子自组装形成的纳米管在血清和核酸酶中是稳定的。双侧脑注射后,纳米管在肿瘤中比在正常脑中更易保留,并通过清道夫受体结合和巨胞饮作用被胶质母细胞瘤细胞吸收。静脉注射后,它们穿过 BBTB 并内化到胶质母细胞瘤细胞中。在微小残留疾病模型中,局部给药阿霉素在脾脏和肝脏中显示出毒性迹象。相反,通过纳米管输送阿霉素不会引起全身毒性,并提高小鼠的存活率。我们的结果表明,ssDNA 纳米管是一种很有前途的胶质母细胞瘤药物输送载体。