
XiaoMi-AI文件搜索系统
World File Search System表达
过表达磷酸烯醇丙酮酸的转基因小鼠
摘要 肝糖异生增加被认为是导致非胰岛素依赖型糖尿病 (NIDDM) 患者空腹血糖升高的一个重要因素。磷酸烯醇式丙酮酸羧激酶 (GTP) (PEPCK;EC 4.1.1.32) 是一种糖异生调节酶。为了研究 PEPCK 基因表达在 NIDDM 发展中的作用,我们培育了转基因小鼠系,这些小鼠在其自身启动子的控制下表达 PEPCK 微基因。转基因小鼠血糖升高,血清胰岛素浓度较高。此外,还检测到肝糖原含量和肌肉葡萄糖转运蛋白 GLUT-4 基因表达的变化。PEPCK 基因的过度表达导致原代培养肝细胞中丙酮酸产生葡萄糖增加。当进行腹膜内葡萄糖耐量测试时,血糖水平高于正常小鼠的血糖水平。该动物模型显示肝脏葡萄糖生成率的原始改变可能导致胰岛素抵抗和 NIDDM。

表达兴趣的标准请求...
9。谈判9.1然后应邀请排名第一的顾问进行谈判。如果谈判失败,采购机构应以书面形式告知顾问,终止谈判的原因,然后邀请EOI的顾问排名第二,以谈判合同。一旦与第二个排名顾问的谈判开始,采购机构就不会重新开放早期的谈判。

邀请表达兴趣的通知(EoI)...
编制环境研究报告,包括必要的调查、可行性评估、范围界定、基线数据收集、环境影响评估、缓解措施和环境影响评估报告、公众咨询、环境管理计划的监测和实施、风险分析、环境保护措施评估、土地保护(包括植树造林)、环境控制和监测研究等。城市级/区域级/区域级环境研究和规划包括土壤研究、岩土和水文研究(包括地下水和含水层研究)、环境敏感区域清单、环境调查和研究(包括栖息地、污染、热岛研究、热点分析等),以及编制环境保护政策和管理计划和 DPR。5 公共交通和公路工程

数字i的标准形式。表达完整...
老师的活动:要求学生大声分享一些答案,并解释他们如何到达解决方案。审查以标准形式编写数字的步骤:将小数点放在第一个重要数字之后。计算小数移动以确定10的功率的位置数。纠正任何常见错误(例如,编写“ 56×10^6”,而不是“ 5.6×10^6”)。

低分辨率面部表达识别的硬样品感知一致性
面部表达识别(FER)在计算机视觉应用中起着关键作用,包括视频不存在和人类计算机的相互作用。尽管FER的进展没有局部进步,但在处理在现实世界情景和数据集中遇到的低分辨率面部图像时,性能仍然会摇摆不定。一致性约束技术引起了人们的关注,以产生强大的卷积神经网络模型,从而通过增强来适应变化,但它们的功效在低分辨率FER的领域中得到了影响。这种性能下降可以归因于网络难以提取表达特征的增强样本。在本文中,我们确定了在考虑各种程度的分辨率时引起过度拟合问题的硬样品,并提出了新颖的硬样品感知一致性(HSAC)损失函数,其中包括组合注意力同意和标签分布学习。通过结合高分辨率和翻转低分辨率图像的激活图,将注意力图与适当的目标注意图与适当的目标注意图与适当的目标注意力图相结合的注意图与适当的目标注意力图的注意力图对齐。我们通过结合原始目标和高分辨率输入的预测来测量低分辨率面部图像的分类难度,并适应标签分布学习。我们的HSAC通过有效管理硬样品来赋予网络能够实现概括。各种FER数据集上的广泛实验证明了我们提出的方法比现有方法的多尺度低分辨率图像的优越性。此外,我们在原始RAF-DB数据集中达到了90.97%的最新性能。

药房数据项目的兴趣表达
●以NHS数据标准的速度和遵守,提供高质量匿名或经过验证的合成患者数据的能力。●支持您团队技术 /医学专家的参与,以帮助我们了解数据。●能力和承诺以速度工作,包括建立合同和数据共享协议。●愿意被确定为媒体和期刊的政府合作伙伴。我们希望在2月中旬开始这项工作,探索阶段持续了大约8周。如果结果为正,则可能会扩展项目。

通过瞬时表达实现有用蛋白质高产量的基因工程...
我们的目标是开发转基因本氏烟植物,利用瞬时表达系统产生大量有用蛋白质。我们已经创建了可以敲低(RNAi)或敲除(基因组编辑)目标基因的转基因植物。
AHNAK在肌萎缩性横向硬化症中的差异表达。
我们使用GEO2R使用了微阵列数据集GSE56808(3)和GSE26276(4)对ALS患者细胞和组织的这种差异基因表达分析。GSE56808是使用Affymetrix人基因组U133加上2.0阵列技术生成的,n = 6个对照成纤维细胞,n = 6 ALS患者成纤维细胞;使用了平台GPL570。GSE26276是使用Affymetrix人基因1.0 ST阵列技术生成的,N = 3对照骨骼肌和n = 3 ALS患者骨骼肌;使用了平台GPL6244。P值调整的Benjamini -Hochberg方法用于对差异表达进行排名,但原始的P值用于评估全局差异表达的统计显着性。对数字转换,并使用了NCBI生成的平台注释类别。使用两尾t检验进行了统计检验,以评估患者和对照成纤维细胞之间的AHNAK表达是否显着差异。

区域DNA甲基化对基因表达的影响
摘要DNA甲基化对仓鼠腺嘌呤磷酸蛋白酶基转移酶(APRT)和疱疹胸苷激酶(TK)基因的跨遗传活性的影响。通过使用包含这些基因序列的M13构建体,使用限制性片段启动引物第二链合成在体外甲基化的特定段使用底物2'-脱氧-5-甲基-5-甲基 - 胞迪三丁烷三磷酸(DMCTP)。通过DNA-MEDI-ETED共转移将这些杂交甲基化分子插入小鼠LTK细胞中。在所有情况下,整合序列都保留了体外定向的甲基化模式。在5'区域中CpG甲基化抑制了APRT基因,但在3'端或相邻的M13序列中未能通过甲基化来进行。与此相反,在5'启动子区域和TK基因的3'结构区域中的DNA甲基化都具有很强的抑制作用。这表明这种修饰可能会通过不涉及RNA聚体识别序列直接改变的机制影响转录。
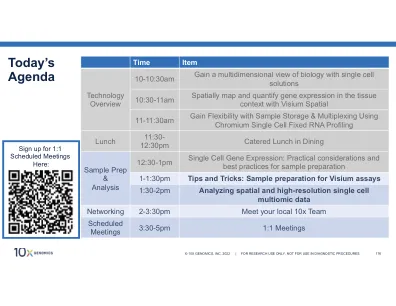
Visium 空间基因表达
N -7EA>H7 4;A>A9;53> 3D5:;F75FGD7 ;@ @AD?3> 3@6 6;E73E76 F;EEG7 I;F: #7?3FAJK>;@ 3@6 AE;@ # AD $??G@A8>GAD7E57@57 $! EF3;@;@9