
XiaoMi-AI文件搜索系统
World File Search SystemCas13

第 14 章 CRISPR/Cas13:一种用于植物 RNA 编辑的新型新兴工具
摘要 成簇的规律间隔短回文重复序列(CRISPR)和CRISPR相关蛋白(Cas)是细菌和古菌中对抗入侵核酸和噬菌体的适应性免疫系统。根据效应蛋白的组成,CRISPR/Cas大致分为多种类型和亚型。其中,VI型CRISPR/Cas系统尤受关注,有VI-A、VI-B、VI-C和VI-D四个亚型,被认为从转座子进化而来。这些亚型在结构架构和机制上表现出差异,具有多种Cas13a(C2c2)、Cas13b1(C2c6)、Cas13b2(C2c6)、Cas13c(C2c7)和Cas13d效应蛋白。CRISPR/Cas13 核糖核酸酶将前 crRNA 加工成成熟的 crRNA,后者在病毒干扰过程中靶向并敲除噬菌体基因组的单链 RNA。这种蛋白质的高特异性 RNA 引导和 RNA 靶向能力使其能够与多种效应分子融合,为 Cas13 介导的 RNA 靶向、追踪和编辑领域开辟了新途径。CRISPR/Cas13 具有靶向包括植物在内的 RNA 的独特功能,因此可以用作一种新的工具,用于工程干扰植物病原体(包括 RNA 病毒),具有更好的特异性,并可用于植物中的其他 RNA 修饰。荧光探针标记的失活可编程 Cas13 蛋白可用作体外 RNA 研究的替代工具。工程化的 Cas13 也可用于可编程的 RNA 编辑。CRISPR/Cas13 的高靶向特异性、低成本和用户友好的操作使其成为多种基于 RNA 的研究和应用的有效工具。因此,本章的重点是 CRISPR/Cas 系统的分类、VI 型 CRISPR/Cas 系统的结构和功能多样性,包括其发现和起源、机制以及 Cas13 在植物 RNA 编辑中的作用。

CRISPR-RFXCAS13D筛选发现BCKDK作为职位
。cc-by-nc-nd 4.0国际许可证(未获得同行评审证书)获得的是作者/资助者,他已授予Biorxiv授予Biorxiv的许可,以永久显示预印本。这是该版本的版权所有,于2024年5月23日发布。 https://doi.org/10.1101/2024.05.22.595167 doi:Biorxiv Preprint

低复制CRISPR-CAS13D减轻侧支RNA裂解
g,靶向必需(红色)和非必需(蓝色)基因(n = 4个GRNA)的单个GRNA的归一化耗竭。钻石表示GRNA的中位数。中间95%的非靶向(NT)GRNA的分布以灰色显示。箱图表明所有靶向必不可少的GRNA(平均DEPMAP计时<-1,n = 1,095个细胞系)(红色)和非必需(Chronos> -0.25)(蓝色)基因(蓝色)基因和HAP1细胞中的基因,并使用两侧Mann -Whitney U Test确定了显着性。

具有单核苷酸的高保真DNAZYME辅助CRISPR/CAS13A系统解决特异性
有两种改善特定城市Cas12a和Cas13a核酸酶的常用方法。是工程师CRRNA,包括将合成不匹配引入crrna的间隔域,设计发夹 - 间隔者CRRNA,以及用2 0 -O -methyl修改CRRNA。21 - 25然而,必须仔细设计不匹配的CRRNA中的数量和位置,以减少无靶标的效果,而无需牺牲CAS蛋白的裂解活性。22,23更重要的是,使用发夹蛋白 - 间隔者CRRNA和2 0-O-methyl modi crrna仅将原始CRISPR/CAS系统的特定城市提高了2至3倍。24,25另一种方法是高级工程cas蛋白。26 - 28,由于复杂的蛋白质表达和筛选过程,它仍然与之合作。此外,所有这些策略旨在优化CRISPR/CAS系统的不同组成部分,而无需克服裂解效率和特定城市之间的基本交易。因此,可以显着改善特定城市的策略对于它们的实际应用(例如生物传感)非常需要,因为它们将避免误解积极的结果。dnazymes(也称为脱氧核酶,DNA酶或催化DNA),是单链DNA分子,具有

“一种用于研究替代方案的 CRISPR-dCas13 RNA 编辑工具......
“一种用于研究可变剪接的 CRISPR-dCas13 RNA 编辑工具” Yaiza Núñez-Álvarez 1§*、Tristan Espie--Caullet 1,2,6§、Géraldine Buhagiar 2,6、Ane Rubio-Zulaika 3、Josune Alonso-Marañón 3、Elvira Perez-Luna 2,6、Lorea Blazquez 3-5、Reini F. Luco 1,2,6 * 1. 蒙彼利埃大学人类遗传学研究所,CNRS UMR9002,法国蒙彼利埃。 2. 巴黎萨克雷研究大学居里研究所,CNRS UMR3348,91401 奥赛,法国。 3. 西班牙Biogipuzkoa健康研究所神经科学系,20014圣塞瓦斯蒂安 4. 西班牙巴斯克科学基金会Ikerbasque,48009毕尔巴鄂5. CIBERNED,ISCIII(CIBER,西班牙科学与创新部卡洛斯三世研究所),28031 马德里,西班牙 6. 由抗癌联盟支持的团队。 § 这些作者贡献相同* 通讯作者::ynunez@biotech-foods.com 和 reini.luco@curie.fr 摘要 可变剪接允许从同一基因产生多个转录本,从而使蛋白质库多样化,并在编码基因组有限的情况下获得新的功能。它可以影响多种生物过程,包括疾病。然而,由于在生理背景下剖析每个剪接异构体的精确作用的局限性,其重要性长期以来一直被低估。此外,识别关键调控元件以纠正有害的剪接异构体也同样具有挑战性,这增加了解决可变剪接在细胞生物学中的作用的难度。在这项工作中,我们利用 dCasRx(一种靶向 CRISPR-dCas13 直系同源物的催化无活性 RNA),以经济高效的方式有效地切换内源转录物的可变剪接模式,而不会影响整体基因表达水平。此外,我们展示了 dCasRx 剪接编辑系统的一个新应用,用于识别特定剪接事件的关键调控 RNA 元素。通过这种方法,我们正在扩展 RNA 工具包,以更好地了解可变剪接的调控机制及其在各种生物过程(包括病理状况)中的生理影响。关键词 可变剪接; CRISPR-dCas13,dCasRx;剪接编辑;顺式调节 RNA 元件、RNA 基序。

CRISPR-Cas13a系统的应用进展
成簇的规律间隔短回文重复序列 (CRISPR) 和 CRISPR 相关 (Cas) 蛋白是一种适应性免疫系统,可保护原核生物和一些感染原核生物的病毒免受外来核酸(如病毒和质粒)的侵害。大多数古细菌和大约一半的细菌的基因组都含有各种 CRISPR-Cas 系统。CRISPR-Cas 系统依赖于 CRISPR RNA (crRNA)。它们充当导航系统,通过识别入侵的外来核酸并结合 Cas 蛋白来特异性地切割和破坏外来核酸。在本综述中,我们简要概述了 CRISPR-Cas 系统的进化和分类,重点介绍了 CRISPR-Cas13a 系统的功能和应用。我们描述了 CRISPR-Cas13a 系统并讨论了其 RNA 指导的核糖核酸酶功能。同时,我们简要介绍了CRISPR-Cas13a系统的作用机制,并总结了CRISPR-Cas13a系统在病原体检测、真核生物、农业、生物传感器和人类基因治疗中的应用。我们对CRISPR-Cas13a的正确理解已经得到拓宽,CRISPR-Cas13a系统将有助于开发新的RNA靶向工具。因此,了解CRISPR-Cas13a效应蛋白的结构、功能和生物学特性的基本细节对于优化RNA靶向工具至关重要。

重新利用 CRISPR-Cas13 系统实现稳健的 mRNA 反式剪接
。CC-BY-NC-ND 4.0 国际许可证下可用(未经同行评审认证)是作者/资助者,他已授予 bioRxiv 永久展示预印本的许可。它是此预印本的版权持有者此版本于 2024 年 2 月 8 日发布。;https://doi.org/10.1101/2024.02.06.579165 doi:bioRxiv 预印本

基于CRISPR-CAS13A系统,为禽流感病毒建立快速的视觉检测方法
迅速,特定且敏感地检测禽流感病毒(AIV),这项研究建立了一种基于定期群散布的短palindromic重复序列(CRISPR)和CRISPR相关蛋白13A(Cas13a)的重组酶辅助扩增(RAA)的视觉检测方法。在这项研究中,根据AIV核蛋白(NP)基因的保守序列设计了特定的引物和CRRNA RNA(CRRNA)。raa技术用于放大目标序列,并通过侧流量尺(LFD)视觉检测到放大产物。评估了Raa-Crispr-Cas13a-lfd的特定峰,敏感性和可重复性。同时,使用该方法和聚合酶链反应(PCR) - 琼脂糖电泳方法检测临床样品,并计算了两种检测方法的重合速率。结果表明,RAA-CRISPR-CAS13A-LFD方法可以实现目标基因片段的特定扩增,并且可以通过LFD视觉观察到检测结果。同时,与感染性支气管炎病毒(IBV),传染性喉咙痛病毒(ILTV)和纽卡斯尔病毒病毒(NDV)没有交叉反应。灵敏度达到10 0拷贝/ µL,比PCR-琼脂糖电泳方法高1,000倍。临床测试的巧合率为98.75%,总反应时间约为1小时。在这项研究中建立的RAA-CRISPR-CAS13A-LFD方法具有快速,简单,强大的特异性和高灵敏度的优点,这为AIV检测提供了新的视觉方法。
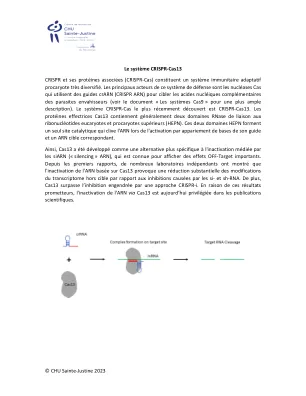
CRISPR-CAS13系统
CRISPR及其相关蛋白质(CRISPR-CAS)构成了一种适应性的非常多样化的procaryote免疫系统。该防御系统中的主要参与者是使用Crarn(CRISPR RNA)指南来靶向入侵寄生虫的其他核酸的核酸酶(有关更大的描述,请参见文档“ Cas9 Systems”)。最近发现的CRISPR-CAS系统是CRISPR-CAS13。cas13有效蛋白通常包含两个RNase,例如RNase,具有真核核糖核苷酸和上原核生物(HEPN)。这两个HEPN结构域形成一个单个催化位点,该催化位点在通过其引导的基础和相应的靶RNA激活时闭合RNA。

一种正交激活的 CRISPR-Cas13d 纳米前药,可逆转化学耐药性,从而增强化学光动力疗法
通过运输氧化/还原形式的谷胱甘肽及其药物偶联物来改变细胞的氧化还原状态;并且与癌症的不良临床结果(例如预后不良)密切相关。4因此,MRP1 是耐药癌细胞的“致命弱点”之一。5越来越多的证据表明,通过基因沉默方法下调 MRP1 基因可以逆转 MRP1 介导的耐药性。6例如,已发现成簇的规律间隔的短回文重复相关蛋白 9 (CRISPR-Cas9) 技术可以逆转由 ATP 结合盒 (ABC) 转运蛋白介导的 MDR,由于其设计简单、靶区域灵活、编辑效率更高和多路复用,其结果明显高于其他基因编辑技术。 7 – 10 尽管取得了巨大进展,但大多数 CRISPR-Cas9 系统仍然存在一些棘手的问题,包括非靶标基因组改变和基因毒性、Cas9 特异性 T 细胞的潜在免疫风险以及不令人满意的靶向递送。8 为了应对这一挑战,RNA 引导的 VI 型 Cas 蛋白 CRISPR-Cas13d 已被证实可在不改变基因组的情况下敲低靶基因。11,12 重要的是,与 Cas9 蛋白相比,