
XiaoMi-AI文件搜索系统
World File Search SystemG4

g4access识别G Quadruplexes及其与开放的染色质和印迹控制区域的关联
后唑启动子富集于次级DNA结构形成基序中,例如G-四链体(G4S)。在这里,我们描述了“ G4Access”,这是一种通过核酸酶消化与开放染色质相关的分离和序列G4的方法。g4Access是抗体和交联的非依赖性和富集的计算预测G4S(PG4S),其中大多数在体外得到了证实。使用人和小鼠细胞中的G4ACCESS,我们鉴定出与核小体排除和启动子转录相关的细胞类型的G4富集。G4ACCESS允许测量G4配体处理后G4曲目使用的变化,HDAC和G4解旋酶抑制剂。将G4ACCESS应用于来自相互杂交小鼠交叉的细胞表明G4在控制活动印迹区域中的作用。一致地,我们还观察到G4ACCESS峰是未甲基化的,而PG4S的甲基化与DNA上的核小体重新定位相关。总体而言,我们的研究为研究细胞动力学的G4提供了一种新工具,并突出了它们与开放染色质,转录及其对DNA甲基化的拮抗作用的关联。

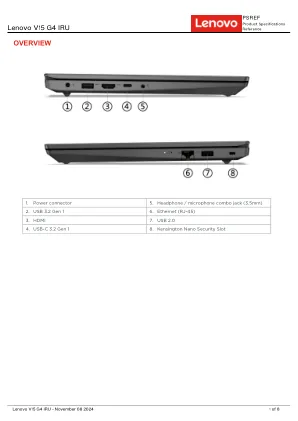
联想 V15 G4 IRU - 概述
[1] 以下端口的传输速度会有所不同,并且取决于许多因素,例如主机设备的处理速度、文件属性以及与系统配置和操作环境相关的其他因素,会比理论速度慢。USB 2.0:480 Mbit/s;USB 3.2 Gen 1(SuperSpeed USB 5Gbps,以前称为 USB 3.0/USB 3.1 Gen 1):5 Gbit/s;USB 3.2 Gen 2(SuperSpeed USB 10Gbps,以前称为 USB 3.1 Gen 2):10 Gbit/s;USB4® 20Gbps/USB 3.2 Gen 2x2(SuperSpeed USB 20Gbps):20 Gbit/s;USB4® 40Gbps(USB 40Gbps):40 Gbit/s;Thunderbolt™ 3/4:40 Gbit/s。

G4-DNA和G4-RNA在类开关重组中的作用以及B淋巴细胞中的其他法规 基于氨基吡咯支架的HIV-1核素蛋白的一类有效抑制剂 具有有限容量能量队列的多类能量数据包网络 多电源EM免疫的实验表征 根据BET方程计算的表面积如何可重现? 基于离子电活性聚合物的三层微型演员的建模,分析和表征
摘要:成熟的B细胞通过类开关重组(CSR)显着使免疫球蛋白(IG)生产多样化,从而允许遥远的“开关”区域的连接。CSR是由Activation诱导的脱氨酶(AID)启动的,该酶(AID)靶向在转录的靶向S区域的单链DNA中充分暴露的细胞糖苷,具有对WRCY基序的特定亲和力。在MAM-MALS中,富含G的序列还存在于S区域,形成有利于CSR的规范G-四链体(G4S)DNA结构。与G4-DNA(G4配体)相互作用的小分子被证明能够在B淋巴细胞中调节CSR,这要么积极地(例如核苷二磷酸激酶同工型)或负面的(例如RHPS4)。G4-DNA也与转录的控制有关,由于它们对CSR和转录调控的影响,富含G4的序列可能在B细胞恶性肿瘤的自然史上起作用。由于G4-DNA位于基因组中的多个位置,尤其是在癌基因启动子中,因此尚待澄清它如何更具体地促进生理学中的合法CSR,而不是致病性易位。G4结构在转录DNA和/或相应的转录本和重组中的特定调节作用似乎是理解免疫反应和淋巴结发生的主要问题。

AN5558:空间应用中 RTG4™ 和 RT PolarFire® FPGA 的热管理和安装方法(早期 AC486)
结到外壳 (Θjc) 热阻设置:在封装顶部安装一个充当边界条件的冷板。较热结和冷板之间的温差迫使热量从芯片表面流到封装顶部。根据 CG/CGG1657 和 CG1509 封装的结构,由于结到外壳的热阻较低,因此可以通过 Kovar 盖散热(图 1 和表 1-1)。但是,绑在 Kovar 盖顶部的散热器会增加 CG/CGG1657 和 CG1509 封装的质量。航天器发射期间封装所经受的冲击和振动可能会使封装的焊柱引脚承受巨大的应力,从而对焊柱引脚和焊点造成潜在损坏。此外,用于将盖子粘合到硅芯片背面的热界面材料 (TIM) 可能会损坏。

dlg4基因
参考•征税AM,Word-Perers P,Tumer Z.神经发育障碍PSD-95和相互作用伙伴。是J Mol Sci。2022 Apr 15; 23(8):4390.doi:10.390/ijms2•Moutton S,Bruel AL,协会M,Citizen M,Sarrazin E,Guerrot AM。 A,Tran-Mau-他们F,Philippe C,Duffourd Y,Thuvin-Obined C,Faivre L.临床基因。2018 Jun; 93:172-1 doi:10,1111/cge.13243.EPUB 2018 APR 14。• Shipping: MM Boerriger, Gomem-Andres D, Aldinger KA, Marcos- Altalde I, Popp B, Everman AK, Arpin S, Arpin S, Veunders G, Birgeon AM, Bjerregaard VA, Bruel AL, TD Challman, Cogne B, Country, Man SA, Denomen-Pichon AS, Dye TJ, Elmslie F, Feuk L, Gertler T, Girortler N, Haack TB, Haack TB, Haack TB, Haack TB, CR, Haukanes BI, HoyerJ, ACE Hurst, Isidor B, MJ Souler, Kushary S, Kvarung M, Landaus YE, Landstand A, Kleinendorst L, MasKenzie A. S, Muller AJ, Leary M, Black-Miguez Miguez Miguez Miguez Miguez Miguez Miguez Miguez Miguez Miguez Miguez Miguez M, Revah-St, RossMJ, Sarrazin E, Savatt JM, Schluter A, Schluter A, Schluter A, Schluter A, Schluter A, Schluter A, Schluter A, Schonewolf-Greulich


G4 生物学-生物化学
1) Watson, J.-D. & Crick, F.-H. (1953) 核酸的分子结构;脱氧核糖核酸的结构。Nature,171,737 ‒ 738。 2) Zhao, J.、Bacolla, A.、Wang, G.、& Vasquez, KM (2010) 非B型DNA结构引起的遗传不稳定性与进化。Cell. Mol. Life Sci.,67,43 ‒ 62。 3) Asamitsu, S.、Takeuchi, M.、Ikenoshita, S.、Imai, Y.、Kashi- wagi, H.、& Shioda, N. (2019) G-四链体结构在神经生物学和神经药理学中的应用前景。Int. J. Mol. Sci. , 20 , 2884. 4) Kumar, N., Sahoo, B., Varun, K.-A., Maiti, S., & Maiti, S. (2008) 环长度变化对四链体-沃森-克里克双链体竞争的影响。核酸研究。, 36 , 4433 ‒ 4442。5) Bhattacharyya, D., Mirihana Arachchilage, G., & Basu, S. (2016) G-四链体折叠和稳定性中的金属阳离子。前沿化学。, 4 , 38。6) Keniry, M.-A. (2001) 核酸中的四链体结构。生物聚合物,56,123-146。7) Yaku, H., Fujimoto, T., Murashima, T., Miyoshi, D., & Sugi-moto, N. (2012) 酞菁:一类具有许多潜在应用的新型 G-四链体配体。Chem. Commun. (Camb.),48,6203-6216。8) Patel, D.-J., Phan, A.-T., & Kuryavyi, V. (2007) 人类端粒、致癌启动子和 5′-UTR G-四链体:用于癌症治疗的多种高阶 DNA 和 RNA 靶点。Nucleic Acids Res. , 35 , 7429 œ 7455. 9) Joachimi, A., Benz, A., & Hartig, J.-S. (2009) DNA 与 RNA 四链体结构与稳定性的比较. Bioorg. Med. Chem. , 17 , 6811 œ 6815. 10) Zhang, A.-Y., Bugaut, A., & Balasubramanian, S. (2011) 分子内 RNA G-四链体稳定性与拓扑结构的环长依赖性序列独立分析. Biochemistry , 50 , 7251 œ 7258. 11) Phan, A.-T., Kuryavyi, V., Luu, K.-N., & Patel, D.-J. (2007)

EG4®Wallmount室内280AH-锂电池EG4®Wallmount室内280AH-锂电池
EG4逆变器的理想合作伙伴可选的导管盒直接搭配到EG4逆变器的连接端口,允许时尚有效的安装。对于其他逆变器或单独的电池安装,应安装导管盒插头。

EG4电子:授权能源独立性并保护您的隐私EG4电子:授权能源独立性并保护您的隐私
在EG4电子产品中,我们致力于使您完全控制自己的能量未来。我们了解到,真正的能源独立性意味着可以自由以您自己的条款管理您的系统,而不会干扰。这就是为什么我们为EG4逆变器引入了强大的新功能:禁用远程支持的能力。此功能使您坐在驾驶员的座位上,使您对储能系统(ESS)充分授权,同时保护您的隐私。