
XiaoMi-AI文件搜索系统
World File Search Systemsplit

使用多派Beamsplitters
广义的量子测量值超出了希尔伯特空间中正式基础的投影的教科书概念。它们不仅具有基本相关性,而且在量子信息任务中也起着重要作用。但是,在没有假定量子设备的特征的情况下,高度要求证明实验会收获通过广义测量所能获得的优势,尤其是超出最简单的Qubit,最简单的Qubit,系统。在这里,我们表明,多派梁插槽允许在较高维度中稳健地实现高质量的广义示意。使用最先进的多核光纤技术,我们在四维希尔伯特空间中实施了七个结果的广义测量,其忠诚度为99.7%。我们提出了一项实用的量子通信任务,并证明了一个成功率,该成功率无法在任何可能的量子协议中基于基于同一维度量子消息的标准投影测量值模拟。我们的方法与现代光子平台兼容,展示了忠实且高质量实施的途径。

用于药物低偏差评估的层次聚类分割......
摘要 — 药物-靶标相互作用 (DTI) 预测在药物发现和化学基因组学研究中非常重要。机器学习,尤其是深度学习,在过去几年中极大地推动了这一领域的发展。然而,学术论文中报告的性能与实际药物发现环境中的性能之间存在显著差距,例如基于随机分割的评估策略在估计现实环境中的预测性能时往往过于乐观。这种性能差距主要是由于实验数据集中隐藏的数据偏差和不适当的数据分割。在本文中,我们构建了一个低偏差 DTI 数据集,并研究了更具挑战性的数据分割策略,以改进现实设置的性能评估。具体而言,我们研究了流行的 DTI 数据集 BindingDB 中的数据偏差,并使用五种不同的数据分割策略重新评估了三种最先进的深度学习模型的预测性能:随机分割、冷药分割、支架分割和两种基于层次聚类的分割。此外,我们全面检查了六个性能指标。我们的实验结果证实了流行的随机分割的过度乐观,并表明基于层次聚类的分割更具挑战性,并且可以在现实世界的 DTI 预测设置中提供对模型通用性的更有用的评估。索引术语——药物-靶标相互作用、数据偏差、数据分割策略、性能评估
一维广义分裂量子步行
摘要:量子步行不仅仅是构建量子算法的工具。在许多复杂的物理过程中,它们已被有效地用于建模和模拟量子动力学。尤其是,一种被称为分裂量子步行的离散时间量子步行的变体与Dirac Cellular Automata和拓扑绝缘子密切相关,其实现依赖于位置依赖于进化算子的控制。由于操纵多个光子自由度的易于性,我们提供了拆分步骤运算符的光学设置,该设置与位置依赖性硬币(PDC)操作结合使用,可以完成广义分配步行的桌面设置。此外,我们提出了用于PDC操作的光学实现,例如,允许实现电量子步行,控制定位动力学并效仿时空曲率效应。此外,我们提出了一个设置,以实现涉及2个J板,2个可变波形,半波浪板,光学开关和光学延迟线的任何t -step splent量子步行步行。

由于定向流导致椭圆流的左右分裂
最近,有研究表明,在非中心相对论重离子碰撞中,椭圆流 v 2 在有限快速度下会分裂,这是由于全局涡度所致。在本研究中,我们发现有限快速度下椭圆流的这种左右(即在撞击参数轴的两侧)分裂是由于非零定向流 v 1 所致,其分裂幅度 ≈ 8 v 1 (1 − 3 v 2 ) / (3 π )。我们还使用多相传输模型(该模型自动包含涡度场和流动波动)来确认 v 2 分裂。此外,我们发现,对于相对于一阶或二阶事件平面测量的原始 v 2 和 v 1(即在应用事件平面解析之前),v 2 分裂的分析预期都成立。由于 v 2 分裂主要是由 v 1 驱动的,因此它在零横向动量( p T )时消失,而且它的大小和符号可能对 p T 、中心性、碰撞能量和强子种类具有非平凡的依赖性。

三路频率分光镜
频域处理在经典和量子光子网络中都具有优势,因为多路复用多个频率的能力允许在多个通道之间高效地传输信息。对于量子信息处理应用,频率自由度已用于定义频率箱量子比特,与空间/偏振量子比特相比,其在损耗方面具有良好的可扩展性 [1]。操纵这些频率箱量子比特需要实现频率模式之间的受控幺正相互作用。最近的进展是开发了由两种频率模式(例如 [2-4])表示的量子比特的频域处理,以及频域三重处理 [5]。实验使用了两种方法:i) 非线性参数过程和 ii) 电光调制。利用参数过程,布拉格散射四波混频 (BS-FWM) 可有效产生高保真量子操作和接近 1 的效率。在这个非线性过程中,两个强泵浦频率模式在两个弱振幅频率模式(信号/闲频)之间引起无噪声频率转换,相当于在布洛赫球上旋转量子比特 [6]。该过程使信号/闲频频率之间的相互作用相位匹配,这些相互作用以零色散频率为中心对称地镜像泵浦频率,如图 1a 所示。由于高阶色散工程,转换过程可以具有频率选择性,从而导致有限的转换效率带宽,如图 1b 所示。尽管双泵 BS-FWM 已经得到充分研究(例如 [4,6,7]),但 N > 2 个泵浦的情况却只得到有限的实验处理 [8]。


具有不受束缚的逆转录酶和环状 RNA 模板的分裂引物编辑器
Es 可实现删除、插入和碱基替换而不会造成双链断裂 1 。然而,目前的 PE2、PE2* 和 PEmax 效应物(nCas9 与 Moloney 鼠白血病病毒 RT(M-MLV RT)的融合)1 – 3 > 6.3 千碱基 (kb),超出了 AAV 的包装能力。高产量生产如此大的蛋白质或 mRNA(用于核糖核蛋白 (RNP) 或 RNA 递送)也是一项挑战。尽管一些拆分策略已用于递送 Cas9 相关基因组编辑工具 4 ,包括拆分内含肽 5 – 7 和 MS2(参考文献 8 – 10)或 SunTag 11 系链,但大多数拆分方法才刚刚开始应用于 PE 2、12、13。这些元素增加了 PE 系统的尺寸、分子复杂性以及生产和递送负担,并且限制了 PE 开发的组合吞吐量(即核酸酶和 RT 成分的混合和匹配)。pegRNA 优化对于有效的引物编辑也很重要。当前的 pegRNA 是一种结合 RNA,由 sgRNA 和包含 RT 模板 (RTT) 和引物结合位点 (PBS) 的 3′ 延伸组成。尽管在 PE 系统中整合 RNA 分子很简单,但由于 PBS 和间隔区之间不可避免的碱基配对以及潜在的 RTT-支架相互作用,它容易发生 RNA 错误折叠。最后,pegRNA 中的 3′ 末端延伸暴露在外,易受核酸酶降解,这可能会损害 pegRNA 的完整性。虽然 3′ 末端二级结构提高了 pegRNA 的稳定性 14 ,但仍需要进一步努力减少 pegRNA 的错误折叠和不稳定性。
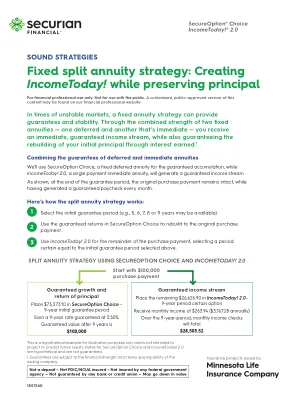
声音策略固定拆分年金策略:创建Incometay!在保留本金的同时
年金旨在是长期,税收的退休工具。分配时收入应作为普通收入应纳税,如果在59½岁之前撤回,则可能受到10%的联邦税收罚款。收入付款和立即年金的提款通常应作为一年中的普通收入征税。如果年金将资助IRA或其他税收合格计划,则税收延期功能没有任何额外的价值。来自Roth IRA的合格分配通常被排除在总收入之外,但税收和罚款可能适用于非合格分配。请咨询税务顾问以获取特定信息。有与年金相关的费用和费用,例如提早提款的投降费用(递延销售费用)。请记住,年金收入选项,频率和付款日期!2.0一旦当选就无法更改。某些期间的可用性可能受到限制。拆分年金策略假定保证金选择年金中持有的资金保留在初始保证期结束之前,并且没有提款。在初始保证期内从年金中撤回,投降或转折的金额可能会受到投降费用和/或市场价值调整。市场价值调整可能会对年金的价值产生积极或负面的影响。最大投降费用为9%,每年减少1%,直到初始保证期结束。这是用于信息和教育目的的一般沟通。材料和信息不适用于任何人的个人情况。不应将其视为投资建议,

通过裂域 CRISPR–Cas12a gRNA 开关进行序列独立的 RNA 传感和 DNA 靶向
CRISPR 技术越来越需要对核酸酶活性进行时空和剂量控制。一种有前途的策略是将核酸酶活性与细胞的转录状态联系起来,通过设计引导 RNA (gRNA) 使其仅在与“触发”RNA 复合后发挥作用。然而,标准的 gRNA 开关设计不允许独立选择触发和引导序列,从而限制了 gRNA 开关的应用。在这里,我们展示了 Cas12a gRNA 开关的模块化设计,它可以将这些序列的选择分离。Cas12a gRNA 的 5' 端融合到两个不同且不重叠的结构域:一个与 gRNA 重复碱基配对,阻止 Cas12a 识别所需的发夹结构的形成;另一个与 RNA 触发物杂交,刺激 gRNA 重复的重新折叠和随后的 gRNA 依赖性的 Cas12a 活性。使用无细胞转录翻译系统和大肠杆菌,我们表明设计的 gRNA 开关可以响应不同的触发因素并靶向不同的 DNA 序列。调节传感域的长度和组成会改变 gRNA 开关的性能。最后,可以设计 gRNA 开关来感知仅在特定生长条件下表达的内源性 RNA,从而使 Cas12a 靶向活性依赖于细胞代谢和压力。因此,我们的设计框架进一步使 CRISPR 活性与细胞状态挂钩。