
XiaoMi-AI文件搜索系统
World File Search Systemusing

使用细菌代谢物作为免疫调节剂的挑战和局限性
利用细菌代谢物的免疫调节潜力为治疗各种免疫相关疾病的令人兴奋的可能性。但是,将这种潜力变成现实带来了重大挑战。本综述调查了这些挑战,重点是发现,生产,表征,稳定,配方,安全性和个人可变性限制。强调了许多代谢产物的有限生物利用度以及潜在的改进以及脱靶效应的潜力和精确靶向的重要性。此外,研究了肠道细菌代谢物与微生物组之间的复杂相互作用,强调了个性化方法的重要性。我们通过讨论宏基因组学,代谢组学,合成生物学和靶向递送系统的有希望的进步来结束,这对克服这些局限性并为细菌代谢物作为有效免疫调节剂的临床翻译铺平了希望。
使用高密度微电极阵列对脑器官进行功能成像
研究已提供证据表明,人类脑类器官 (hCO) 重现了早期大脑发育的基本里程碑,但关于其功能和电生理特性的许多重要问题仍然存在。高密度微电极阵列 (HD-MEA) 是一种有吸引力的分析平台,可用于在细胞和网络规模上进行神经元网络的功能研究。在这里,我们使用 HD-MEA 从切片 hCO 中获取大规模电生理记录。我们记录了几周内 hCO 切片的活动,并从药理学角度探究观察到的神经元动态。此外,我们还展示了如何对获得的记录进行尖峰分类并随后进行跨尺度研究的结果。例如,我们展示了如何在 HD-MEA 上跟踪几天内的单个神经元以及如何推断轴突动作电位速度。我们还从 hCO 记录中推断出假定的功能连接。引入的方法将有助于更好地理解脑类器官中正在发育的神经元网络,并为它们的功能表征提供新方法。

使用Luminex液体悬浮芯片技术
方法:该研究包括737例患者:585例糖尿病(DM)和152例DKD。人口统计和医学特征的倾向评分匹配(PSM)确定了78例患者的子集(DM = 39,DKD = 39)。使用两个Luminex液体悬浮芯片根据分子量和浓度来检测11个尿生物标志物。The biomarkers, including cystatin C (CysC), nephrin, epidermal growth factor (EGF), kidney injury molecule-1 (KIM-1), retinol-binding protein4 (RBP4), a 1-microglobulin ( a 1-MG), b 2-microglobulin ( b 2-MG), vitamin D binding protein (VDBP), tissue在DM和DKD组中比较了金属蛋白酶-1(TIMP-1),肿瘤坏死因子受体1(TNFR-1)和肿瘤坏死因子受体-2(TNFR-2)的抑制剂。使用接收器操作特征(ROC)曲线分析评估了单个生物标志物和各种生物标志物组合的诊断值。
使用 CRISPR/Cas9 对无融合生殖四倍体草皮和牧草(Paspalum notatum Flügge ́)进行多等位基因编辑
多倍体在禾本科植物中很常见,对传统育种提出了挑战。基因组编辑技术绕过了杂交和自交,能够在一代中对多个基因拷贝进行有针对性的修改,同时保持许多多倍体基因组的杂合背景。巴哈草(Paspalum notatum Flügge ́;2 n =4 x =40)是一种无融合生殖的四倍体 C4 物种,在美国东南部广泛种植,作为肉牛生产和公用事业草坪的饲料。叶绿素生物合成基因镁螯合酶(MgCh)被选为在四倍体巴哈草中建立基因组编辑的快速读出目标。含有 sgRNA、Cas9 和 npt II 的载体通过基因枪法递送到愈伤组织培养物中。通过基于 PCR 的检测和 DNA 测序对编辑植物进行了表征,并观察到高达 99% 的 Illumina 读数的诱变频率。野生型 (WT) 巴哈草的测序显示,MgCh 的序列变异水平很高,这可能是因为存在至少两个拷贝,可能包含八种不同的等位基因,包括假基因。MgCh 突变体表现出明显的叶绿素消耗,叶片绿度降低了 82%。两种品系显示出随时间推移的编辑进展,这与体细胞编辑有关。获得了嵌合 MgCh 编辑事件的无融合生殖后代,并允许在一系列叶绿素消耗表型中识别出统一编辑的后代植物。高度编辑的突变体的 Sanger 测序显示 WT 等位基因的频率升高,可能是由于频繁的同源定向修复 (HDR)。据我们所知,这些实验是首次报道将基因组编辑应用于多年生暖季草皮或牧草。该技术将加速巴哈草品种的开发。
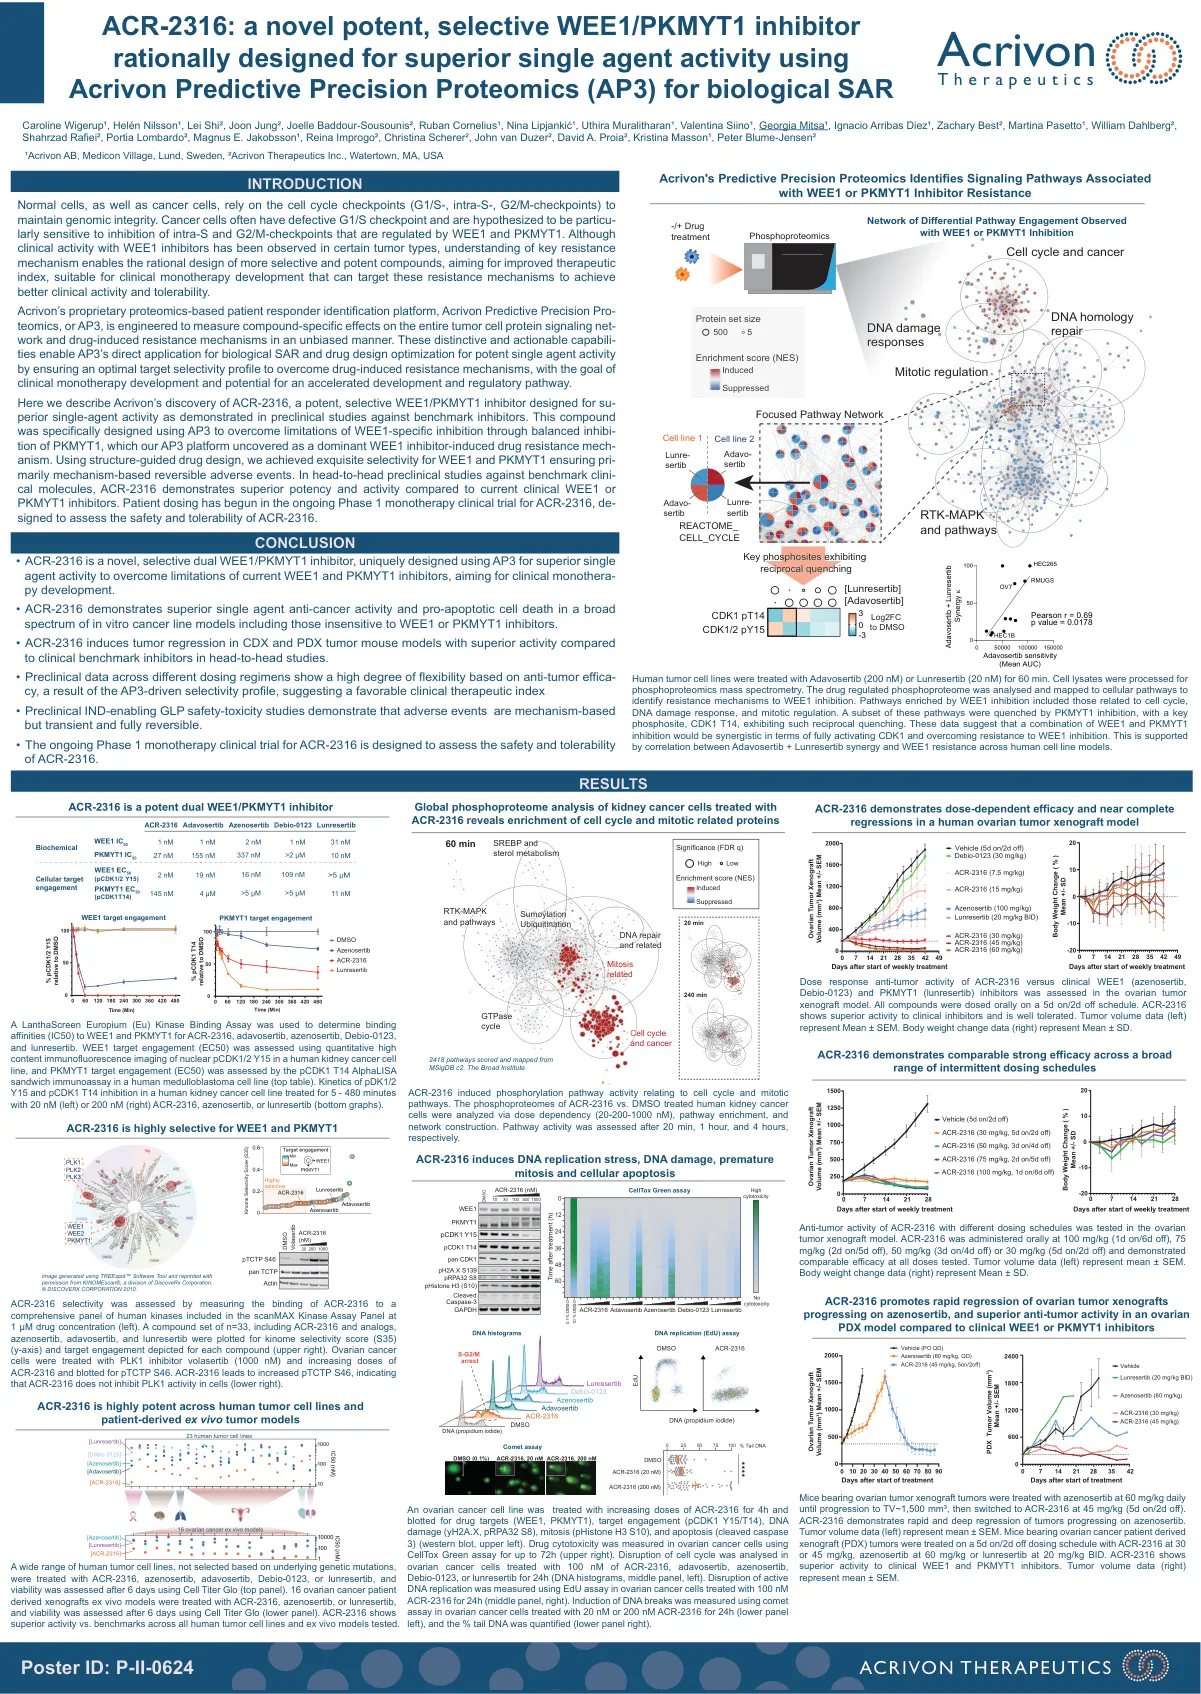
ACR-2316:一种新型强效、选择性 WEE1/PKMYT1 抑制剂,采用 Acrivon Predictive Precision Pr 合理设计,具有优异的单药活性
这里我们描述了 Acrivon 发现的 ACR-2316,它是一种强效、选择性 WEE1/PKMYT1 抑制剂,临床前研究表明其单药活性优于基准抑制剂。该化合物是使用 AP3 专门设计的,通过平衡抑制 PKMYT1 来克服 WEE1 特异性抑制的局限性,我们的 AP3 平台发现这是 WEE1 抑制剂诱导的主要耐药机制。通过结构引导的药物设计,我们实现了对 WEE1 和 PKMYT1 的精确选择性,确保了主要基于机制的可逆性不良事件。在与基准临床分子的头对头临床前研究中,ACR-2316 与目前的临床 WEE1 或 PKMYT1 抑制剂相比表现出更优异的效力和活性。正在进行的 ACR-2316 单药疗法临床试验的患者给药已经开始,旨在评估 ACR-2316 的安全性和耐受性。
使用合成的激子传输工程耦合...
图 1 | 使用 DNA 支架形成 Cy3 聚集体的化学方法。 (a) Cy3 (左) 共价连接到单链 DNA (ss-DNA) 脱氧核糖磷酸骨架的 3' 和 5' 端。 Cy3 修饰的 DNA 纳米结构是通过将 Cy3 修饰的 ssDNA 与规范互补的 ssDNA 链杂交而形成的,如连接到 DNA 双链体的 Cy3 单体的分子动力学快照 (中间) 和示意图 (右、上) 中蓝色椭圆表示 Cy3 所示。 Cy3 二聚体和三聚体是通过将连续的 Cy3 发色团连接到 ssDNA 并与互补链杂交而形成的 (右、中和下) (b) Cy3 单体 (棕色)、二聚体 (蓝色) 和三聚体 (绿色) 的吸光度 (实线) 和量子产率归一化的荧光光谱 (虚线)。 [DNA 双链] = 0.5 µ M,溶于 40 mM Tris、20 mM 醋酸盐、2 mM 乙二胺四羧酸 (EDTA) 和 12 mM MgCl 2 (TAE-MgCl 2 缓冲液)。(c) 双链中 Cy3 单体、二聚体和三聚体的荧光量子产量 (ΦF)。[DNA 双链] = 0.5 µ M,溶于 1 × TAE-MgCl 2 缓冲液。(d) Cy3 单体、二聚体和三聚体的圆二色性 (CD) 光谱。(e) Cy3 单体、二聚体和三聚体的荧光衰减轨迹,仪器响应函数以黑色显示。

利用 CRISPR/Cas9 在体内靶向导致白质消失的变异
白质消失 (VWM) 是一种由 eIF2B 亚基隐性变异引起的白质营养不良。目前,尚无治愈性治疗方法,患者常常英年早逝。由于其单基因特性,VWM 是开发 CRISPR/Cas9 介导的基因治疗的有希望的候选对象。在这里,我们在 VWM 小鼠中测试了一种双 AAV 方法,该方法编码 CRISPR/Cas9 和 DNA 供体模板以纠正 Eif2b5 中的致病变异。我们进行了测序分析以评估基因纠正率,并检查了对 VWM 表型(包括运动行为)的影响。序列分析表明,在目标基因座处超过 90% 的 CRISPR/Cas9 诱导的编辑是插入或缺失 (indel) 突变,而不是通过同源定向修复从 DNA 供体模板进行的精确校正。大约一半的 CRISPR/Cas9 治疗动物过早死亡。 VWM 小鼠在 7 个月大时运动技能、体重或神经系统评分均未改善,而 CRISPR/Cas9 处理的对照组则表现出诱导的 VWM 表型。总之,CRISPR/Cas9 在 Eif2b5 基因座处诱导的 DNA 双链断裂 (DSB) 未导致 VWM 变异的充分校正。此外,Eif2b5 中的插入/缺失形成会加剧 VWM 表型。因此,DSB 独立的策略(如碱基编辑或主要编辑)可能更适合 VWM 校正。
使用 IBM 量子计算机模拟器和 IBM 量子计算机硬件将量子机器学习应用于 LHC 的高能物理分析
我们小组率先在 LHC 的高能物理分析中使用量子机器学习 (QML)。我们已在门模型量子计算机模拟器和硬件上成功将几种 QML 分类算法应用于 ttH(与顶夸克对相关的希格斯粒子生成)和希格斯粒子到两个μ子(希格斯粒子与第二代费米子的耦合)这两项最近的 LHC 旗舰物理分析。模拟研究已使用 IBM Quantum Framework、Google Tensorflow Quantum Framework 和 Amazon Braket Framework 进行,并且我们已实现良好的分类性能,其性能类似于目前在 LHC 物理分析中使用的经典机器学习方法,例如经典 SVM、经典 BDT 和经典深度神经网络。我们还使用 IBM 超导量子计算机硬件进行了研究,其性能令人鼓舞,并且接近 IBM 量子模拟器的性能。此外,我们将研究扩展到其他 QML 领域,例如量子异常检测和量子生成对抗,并已取得一些初步成果。此外,我们还使用 NVIDIA cuQuantum 和 NERSC Perlmutter HPC 克服了大量子比特(25 个量子比特或更多)和大量事件情况下的密集计算资源挑战。
使用一个量子退火器的误差测量
两端施加相反自旋极化的有限长度铁磁链是最简单的受挫自旋模型之一。在干净的经典极限中,由于边界条件而插入的畴壁以相等的概率存在于任何一个键上,并且简并度恰好等于键数。如果通过横向场引入量子力学,畴壁将表现为盒子中的粒子,并且更倾向于靠近链的中间而不是两端。因此,真实量子退火器的一个简单特征是这些极限中的哪一个在实践中实现。在这里,我们使用具有反平行边界自旋的铁磁链来测试真实通量量子比特量子退火器,并发现与两个预期相反,由于存在有效随机纵向场,发现的畴壁分布不均匀,尽管在量子比特之间的耦合名义上为零时进行了调整以将这些场归零。我们对畴壁分布函数的形式进行了简单的推导,并展示了我们发现的效应如何用于确定表征退火器的有效随机场(噪声)的强度。以这种方式测量的噪声小于单量子比特调谐过程中看到的噪声,但仍然会定性地影响退火器执行的模拟结果。