
XiaoMi-AI文件搜索系统
World File Search System免疫
社论:癌症代谢和基于T细胞的肿瘤免疫的当前见解
癌症代谢是阐明肿瘤细胞与免疫细胞之间通信的关键因素。例如,在肿瘤细胞增殖过程中,糖酵解增加导致肿瘤细胞产生大量的L乳酸和TGF-β,从而通过促进肿瘤微环境中的调节性T细胞(TREG)的产生来阻止肿瘤免疫(1)。用2-脱氧葡萄糖(一种糖酵解的抑制剂)治疗可通过减少TREG产生来增强抗肿瘤免疫力。值得注意的是,抗PD-1治疗已被证明可以激活T细胞,同时还促进了肿瘤微环境中的糖酵解。在某些患者中,抗PD-1抗体治疗可能导致肿瘤微环境中Treg的增殖增加,从而限制免疫检查点抑制剂的有效性。Xuekai等。建议,抗PD-1和抗TGF-β疗法的结合可能会提供一种新的解决方案来克服对抗PD-1疗法的抗性。Wang等。 进一步阐明了肿瘤微环境中的TGF-beta如何有助于抵抗抗PD-1治疗。 例如,PD-1在食管癌细胞逃避的免疫中起着至关重要的作用,该细胞表达高水平的TGF-β。 食管癌细胞产生的 TGF-β在与肿瘤相关的巨噬细胞中诱导M2-型,从而减少了通过PD-1/PD-L1途径参与特定抗肿瘤反应的CD8+ T细胞的种群。 此外,TGF-beta间接通过激活肿瘤微环境中的Treg来促进免疫抑制。 )。 Shen等。Wang等。进一步阐明了肿瘤微环境中的TGF-beta如何有助于抵抗抗PD-1治疗。例如,PD-1在食管癌细胞逃避的免疫中起着至关重要的作用,该细胞表达高水平的TGF-β。TGF-β在与肿瘤相关的巨噬细胞中诱导M2-型,从而减少了通过PD-1/PD-L1途径参与特定抗肿瘤反应的CD8+ T细胞的种群。此外,TGF-beta间接通过激活肿瘤微环境中的Treg来促进免疫抑制。)。Shen等。此外,脂质过氧化显着影响肿瘤微环境的调节(Xiao等人。富含脂质的肿瘤微环境可以通过CD36(一种脂肪酸转运蛋白)的上调在肿瘤相关的巨噬细胞中诱导M2型表型。Treg也表达了CD36,使其非常适合富含脂质的环境。在雌激素受体阳性(ER+BR)乳腺癌患者的低风险生存群体和高危生存群体之间的免疫活性,脂质生物合成和药物代谢方面存在差异。分析表明,高危患者表达高水平的ALOX15,一种相关的基因

用于增强癌症免疫治疗的多种药物输送系统:概述
尽管免疫治疗具有明显的优势,但仍存在不可避免的脱靶效应,导致严重的不良免疫反应。近年来,药物递送系统(DDS)的研究和开发日益受到重视。在几十年的发展中,DDS已显示出以精确靶向的方式递送药物以减轻副作用的能力,并具有灵活控制药物释放、改善药代动力学和药物分布的优势。因此,我们认为将癌症免疫治疗与DDS相结合可以增强抗肿瘤能力。在本文中,我们概述了癌症免疫治疗中最新的药物递送策略,并简要介绍了基于纳米载体(脂质体、聚合物纳米胶束、介孔二氧化硅、细胞外囊泡等)和偶联技术(ADC、PDC和靶向蛋白质降解)的DDS的特点。我们的目的是向读者展示不同免疫机制下的各种药物递送平台,并分析它们的优势和局限性,为癌症免疫治疗提供更优越、更准确的靶向策略。
乳腺癌抗肿瘤免疫和免疫治疗反应的表观遗传调节:生物学机制和临床意义
乳腺癌 (BC) 是最常见的非皮肤癌,也是美国女性癌症死亡的第二大原因。乳腺癌的发生和发展可以通过遗传和表观遗传变化的积累来进行,这些变化使转化细胞能够逃脱正常的细胞周期检查点控制。与核苷酸突变不同,DNA 甲基化、组蛋白翻译后修饰 (PTM)、核小体重塑和非编码 RNA 等表观遗传变化通常是可逆的,因此可能对药物干预有反应。表观遗传失调是抗肿瘤免疫力受损、免疫监视逃避和免疫疗法耐药的关键机制。与黑色素瘤或肺癌等高度免疫原性的肿瘤类型相比,乳腺癌被视为免疫静止肿瘤,其肿瘤浸润淋巴细胞 (TIL) 数量相对较少、肿瘤突变负荷 (TMB) 较低,对免疫检查点抑制剂 (ICI) 的反应率适中。新兴证据表明,针对异常表观遗传修饰因子的药物可能通过几种相互关联的机制增强 BC 中的宿主抗肿瘤免疫力,例如增强肿瘤抗原呈递、激活细胞毒性 T 细胞、抑制免疫抑制细胞、增强对 ICI 的反应以及诱导免疫原性细胞死亡 (ICD)。这些发现为使用表观遗传药物与免疫疗法的组合方法作为改善 BC 患者预后的创新范例奠定了非常有希望的基础。在这篇综述中,我们总结了目前对表观遗传修饰因子如何发挥作用的理解

相关免疫细胞浸润的生物信息学分析...
方法:用于对ONFH患者和健康对照组中的mRNA表达训练进行仔细检查,其数据整合来自GEO数据库。de mRNA。通过基因和基因组(KEGG)途径富集分析,基因本体论(GO)功能分析以及基因集富集分析(GSEA)的基因和基因组(KEGG)途径富集分析,基因和基因组百科全书(GSEA)探索了DE mRNA的生物学功能。此外,支持向量机 - 递归特征消除(SVM-RFE)和最低绝对收缩和选择操作员(Lasso)(Lasso)被用来辨别与该疾病相关的诊断生物标志物。接收器操作特征(ROC)分析用于评估特征基因的统计性能。使用QRT-PCR在从ONFH患者和健康对照组中获得的骨组织中进行关键基因的验证。成骨分化,以验证关键基因与成骨分化之间的相关性。最后,执行免疫细胞进行锻炼分析以评估ONFH中的免疫细胞失调,同时探索免疫细胞内效率与关键基因之间的相关性。

与IGA肾病相关的免疫检查点抑制剂治疗:病例报告和文献综述
免疫检查点抑制剂(ICI)显着改善了许多恶性肿瘤的预后,但造成了许多副作用,这可能会限制其好处。与免疫检查点抑制剂相关的急性肾损伤最常见的是急性微调肾小球肾炎(ATIN),但也报道了各种肾小球肾炎病例。在此,我们报告了与ICIS相关的严重IGA肾病(IGAN)的案例,并进行了文献综述。igan在ICIS启动后的5个月(范围1-12个月)的中位数中被诊断出,具有异质性严重程度,通常由皮质类固醇治疗和ICIS中断。与我们的情况相反,文献中的肾脏结局通常是有利的,肾功能恢复和治疗时蛋白尿的减少。尽管与ICIS相关的Igan比Atin的并发症要稀有得多,但仍被诊断出来。在使用ICI之前,应仔细询问和筛查无症状的血尿。


肿瘤免疫
由刺激基因编码的干扰素基因的刺激剂是一种378个氨基酸蛋白,其中包含三个功能结构域,即四个N末端跨膜螺旋,一个中央球状结构域,一个中央球状结构域和C-末端域和一个C-末端域(1,2)。sting,也称为TMEM173,MITA和MPYS,是I型IFN刺激剂,充当内质网适配器蛋白,在先天免疫信号传导中起重要作用(3,4)。先天免疫系统是宿主防御的第一线,可以感知并响应来自外部病原体或内部肿瘤的多种危险信号,从而导致炎症细胞因子的分泌以及近端抗原抗原抗原呈递细胞的成熟和激活(5,6)。环状GMP-AMP合酶(CGAS)是一种直接的细胞质DNA传感器,可以生成第二个信使环鸟嘌呤单磷酸 - 单磷酸盐单磷酸盐(CGAMP)(CGAMP),并招募sting以启动一系列下游反应(7-9)。激活的刺激随后募集并激活储罐结合激酶I(TBK1),然后磷酸化转录因子干扰素调节因子3或核因子kappa b,从而导致其核转移以促进I型IFN基因的转录(9-11)。I型IFN的产生进一步增强了抗肿瘤免疫反应(12)。 刺激对于抗癌免疫至关重要,抗癌免疫涉及免疫细胞(例如树突状细胞,正常千型型(NK)细胞和CD8+T细胞)的激活(13-15)。 此外,肿瘤内刺激激活触发了髓样衍生的抑制细胞(MDSC)和免疫抑制的募集(16)。I型IFN的产生进一步增强了抗肿瘤免疫反应(12)。刺激对于抗癌免疫至关重要,抗癌免疫涉及免疫细胞(例如树突状细胞,正常千型型(NK)细胞和CD8+T细胞)的激活(13-15)。此外,肿瘤内刺激激活触发了髓样衍生的抑制细胞(MDSC)和免疫抑制的募集(16)。癌细胞在肿瘤发育和进展过程中抑制CGA/STING途径,从而导致肿瘤免疫逃避(10)。CGA/STING途径是异质性的,具有肿瘤抑制或促肿瘤的活性,这为抗肿瘤治疗的发展提供了巨大的潜力(17,18)。在T-细胞衍生的肿瘤细胞中发现了与STING相关途径的凋亡功能障碍,而小鼠原发性T细胞白血病对刺痛激动剂的反应过度,这表明刺激者具有强大的治疗潜力(19)。泛癌研究表明,刺激在癌组织中高度表达。此外,刺激表达与某些肿瘤类型的临床结局密切相关,表明该蛋白在肿瘤中起重要作用

延长的小细胞肺癌中的免疫疗法
结果:分析包括214名患者:132(61.7%)在学术癌症中心接受治疗,在两家社区医院中进行了82例(38.3%); 104在2020年5月之前进行了处理。总体研究人群的中位PFS为4.8个月(95%的置信间隔[95%CI]:4.4-5.4),中位OS为7.1个月(95%CI:6.3-7.7)。估计的PFS和OS在2020年5月以后患者的PFS(HR)的PFS(HR)为0.61(95%CI:0.46-0.81,P <0.001)和0.70(分别为95%CI:0.52-0.93,P = 0.015)。6个月的PFS率从27%增加到40%(P = 0.04),而12个月的PFS从1%提高到11%(P = 0.003)。12个月和18个月的OS率从15%增加到28%(p = 0.03)和2.1%至12%(p = 0.009)。2020年5月后,每名患者的住院天数显着降低,严重AE的发生率相似。在接受化学免疫疗法治疗的患者中,与免疫相关的AE的发作
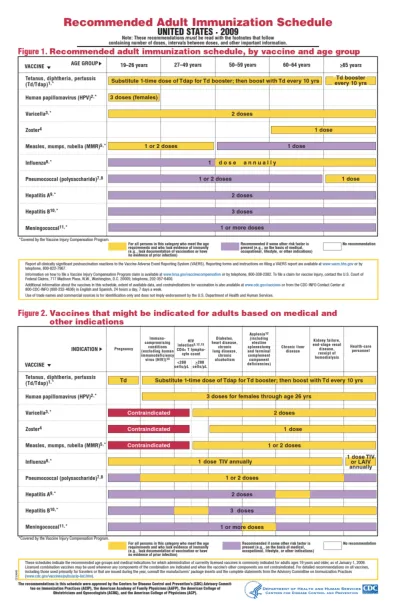
建议成人免疫接种时间表— ...
所有没有证据表明对水痘具有免疫力的成年人,如果之前未接种过疫苗,则应接种 2 剂单抗原水痘疫苗;如果他们只接种过一剂,则应接种第二剂,除非他们有医学禁忌症。应特别考虑以下人群:1) 与重症高风险人群密切接触(例如,医护人员和免疫功能低下人群的家人接触者)或 2) 接触或传播风险高(例如,教师、儿童保育员工、机构环境(包括惩教机构)的居民和工作人员、大学生、军人、与儿童一起生活的青少年和成年人、育龄非孕妇女和国际旅行者)。

细胞介导的免疫到呼吸性合成性病毒 -
组织Cu,Fe和Zn作为实验四甲甲基脑病的主要决定因素。生命科学, /3:897(1973)。24。Packer,L。和Jacobs,E。E。:磷酸化与线粒体呼吸链的末端段的耦合。Biochim。Biphys。 Acta,57:37 I(1962)。 25。 Patel,A。J.,Michaelson,I。 A.,Cremer,J.E。和Balazs,r。:哺乳的大脑的代谢,sucking剂的大鼠被无机铅陶醉。 J. Neurochem。,22:581(1974)。 26。 Patel,A。J.,Michaelson,I。 A.,Cremer,J。E.和Balazs,r。:年轻大鼠摄入铅的大脑中的代谢室内的变化。 J. Neurochem。,22:591(1974)。 27。 Pentschew,A。和Garro,f。:哺乳老鼠的铅瘤性脑病及其对卟啉症神经疾病的影响。 Acta Neuropathol。,6:266(1966)。 28。 Potter,V。R.,Schneider,W。C.和Liebl,G。J。:新生大鼠组织生长和分化过程中的酶变化。 Cancer Res。,5:21(1945)。 29。 Rhyne,B。C.和Goyer,R。A。:实验性铅中毒中肾脏线粒体的细胞色素含量。 EXP。 mal。 Pathol。,14:386(1971)。 30。 Sanadi,D。R.和Jacobs,E。E。:细胞色素氧化酶区域(现场ILL)的氧化磷酸化测定。 JO:38(1967)。 31。 Scott,K。M.,Hwang,K。M.,Jurkowitz。 xxi!l。Biphys。Acta,57:37 I(1962)。25。Patel,A。J.,Michaelson,I。A.,Cremer,J.E。和Balazs,r。:哺乳的大脑的代谢,sucking剂的大鼠被无机铅陶醉。 J. Neurochem。,22:581(1974)。 26。 Patel,A。J.,Michaelson,I。 A.,Cremer,J。E.和Balazs,r。:年轻大鼠摄入铅的大脑中的代谢室内的变化。 J. Neurochem。,22:591(1974)。 27。 Pentschew,A。和Garro,f。:哺乳老鼠的铅瘤性脑病及其对卟啉症神经疾病的影响。 Acta Neuropathol。,6:266(1966)。 28。 Potter,V。R.,Schneider,W。C.和Liebl,G。J。:新生大鼠组织生长和分化过程中的酶变化。 Cancer Res。,5:21(1945)。 29。 Rhyne,B。C.和Goyer,R。A。:实验性铅中毒中肾脏线粒体的细胞色素含量。 EXP。 mal。 Pathol。,14:386(1971)。 30。 Sanadi,D。R.和Jacobs,E。E。:细胞色素氧化酶区域(现场ILL)的氧化磷酸化测定。 JO:38(1967)。 31。 Scott,K。M.,Hwang,K。M.,Jurkowitz。 xxi!l。A.,Cremer,J.E。和Balazs,r。:哺乳的大脑的代谢,sucking剂的大鼠被无机铅陶醉。J.Neurochem。,22:581(1974)。26。Patel,A。J.,Michaelson,I。A.,Cremer,J。E.和Balazs,r。:年轻大鼠摄入铅的大脑中的代谢室内的变化。J.Neurochem。,22:591(1974)。27。Pentschew,A。和Garro,f。:哺乳老鼠的铅瘤性脑病及其对卟啉症神经疾病的影响。Acta Neuropathol。,6:266(1966)。28。Potter,V。R.,Schneider,W。C.和Liebl,G。J。:新生大鼠组织生长和分化过程中的酶变化。Cancer Res。,5:21(1945)。 29。 Rhyne,B。C.和Goyer,R。A。:实验性铅中毒中肾脏线粒体的细胞色素含量。 EXP。 mal。 Pathol。,14:386(1971)。 30。 Sanadi,D。R.和Jacobs,E。E。:细胞色素氧化酶区域(现场ILL)的氧化磷酸化测定。 JO:38(1967)。 31。 Scott,K。M.,Hwang,K。M.,Jurkowitz。 xxi!l。Cancer Res。,5:21(1945)。29。Rhyne,B。C.和Goyer,R。A。:实验性铅中毒中肾脏线粒体的细胞色素含量。EXP。mal。Pathol。,14:386(1971)。30。Sanadi,D。R.和Jacobs,E。E。:细胞色素氧化酶区域(现场ILL)的氧化磷酸化测定。JO:38(1967)。 31。 Scott,K。M.,Hwang,K。M.,Jurkowitz。 xxi!l。JO:38(1967)。31。Scott,K。M.,Hwang,K。M.,Jurkowitz。 xxi!l。Scott,K。M.,Hwang,K。M.,Jurkowitz。xxi!l。M.和Brierly,G。P。:通过心脏线粒体运输离子。铅对线粒体反应的影响。