
XiaoMi-AI文件搜索系统
World File Search Systemisolation
隔离和映射 - 绘制 - 绘制-DNA-序列 - ...
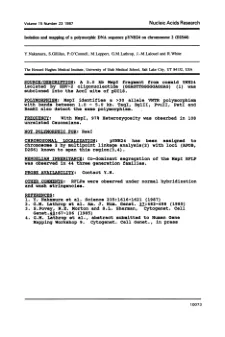
参考:1。Y. Nakamura等。 科学235:1616-1621(1987)2。 G.M. Lathrop等。 am。 J. Hum。 基因。 37:482-498(1985)3。 S.Povey,N.E。 Morton和S.L. Sherman,细胞遗传学。 细胞基因40:67-106(1985)4。 G.M. Lathrop等人,提交给人类基因映射研讨会的摘要9。 细胞遗传学。 细胞遗传学,在Press 中Y. Nakamura等。科学235:1616-1621(1987)2。G.M. Lathrop等。 am。 J. Hum。 基因。 37:482-498(1985)3。 S.Povey,N.E。 Morton和S.L. Sherman,细胞遗传学。 细胞基因40:67-106(1985)4。 G.M. Lathrop等人,提交给人类基因映射研讨会的摘要9。 细胞遗传学。 细胞遗传学,在Press 中G.M.Lathrop等。am。J. Hum。 基因。 37:482-498(1985)3。 S.Povey,N.E。 Morton和S.L. Sherman,细胞遗传学。 细胞基因40:67-106(1985)4。 G.M. Lathrop等人,提交给人类基因映射研讨会的摘要9。 细胞遗传学。 细胞遗传学,在Press 中J. Hum。基因。37:482-498(1985)3。S.Povey,N.E。 Morton和S.L. Sherman,细胞遗传学。 细胞基因40:67-106(1985)4。 G.M. Lathrop等人,提交给人类基因映射研讨会的摘要9。 细胞遗传学。 细胞遗传学,在Press 中S.Povey,N.E。Morton和S.L.Sherman,细胞遗传学。细胞基因40:67-106(1985)4。G.M. Lathrop等人,提交给人类基因映射研讨会的摘要9。 细胞遗传学。 细胞遗传学,在Press 中G.M.Lathrop等人,提交给人类基因映射研讨会的摘要9。细胞遗传学。细胞遗传学,在Press

与牛组织分离的DNA:血液,精液或任何类型的组织,包括耳朵活检
当我们使用商业精子吸管进行萃取时,我们并不总是知道这些吸管的组成,所含的材料量,稀释剂的性质和所使用的防腐剂。这就是为什么有时需要使用几种吸管获得足够的测序材料的原因。有时也是明智的做法(请参见步骤3),以消除稀释剂和防腐剂中的污染物。
什么是DNA隔离定义
DNA提取自1869年弗里德里希·米舍(Friedrich Miescher)首次试图隔离它以来,它已经走了很长一段路,意外地发明了一种核酸隔离方法,后来其他人会完善。该过程涉及分解细胞膜和核信封以获得DNA,这对于PCR,DNA克隆,测序和电泳等各种分子生物学应用至关重要。取决于样本类型 - 需要植物,血液,细菌或其他 - 需要不同的提取方法,每种方法都有自己的手术,以确保DNA的所需纯度和数量。从苯酚 - 氯仿等醇到蛋白酶K,CTAB,自旋柱,磁珠等等,存在各种技术,每个技术都基于样品的特定要求选择。DNA提取的故事是连续的创新和精致之一,像Meselson和Stahl这样的先驱在1958年建立了全功能程序,而其他人则随着时间的推移贡献了他们的方法。从细胞中提取DNA的过程涉及三个主要步骤:细胞裂解,沉淀和溶解DNA。所使用的化学或组合的类型可能会根据目标和细胞类型而有所不同。对于柔软的细胞壁,如在结核分枝杆菌中发现的,用简单的裂解缓冲液加热是有效的。然而,较硬的细胞壁需要机械,化学和酶促方法来提取DNA。基于化学的DNA提取方法是基于溶液的,涉及各种有机和无机溶液。这些包括SDS,CTAB,苯酚,氯仿和硫氰酸鸟酯。所有程序的主要步骤是细胞裂解,降水和洗脱。基于溶液的(化学)DNA提取进一步分为基于有机溶剂的和基于无机溶剂的方法。有机溶剂(如苯酚和氯仿)以前已被使用,但由于危险而灰心。相反,采用了更安全的替代方案,例如Triton X100和EDTA。不同的化学物质有特定目的;蛋白酶K等酶分解蛋白质直接靶向氨基酸连接。DNA提取过程的有效性可能受细胞类型的影响以及某些化合物或化学物质组合的使用。在冷链中,尽管有一些缺点,但基于蛋白酶K的DNA分离方法还是有效的方法。此过程的一个问题是酶的稳定性降低,随着时间的流逝而降低。使用无机溶液(例如氯化钠和乙酸钾)与蛋白酶K结合使用的盐溶液。但是,提取的DNA的纯度可能是一个问题,因为尽管获得了足够的质量,但收益率可能不会令人满意。苯酚 - 氯仿 - 异氧化酒精法(PCI)是提取DNA的另一种流行技术。它使用液化缓冲液,苯酚和氯仿对蛋白质和破坏细胞,从而产生出色的产率和纯度。可以通过使用现成的DNA提取缓冲区来修改此方法,从而快速而简单。高质量的DNA产量和简单操作系统对于准确的DNA分析至关重要。相反,基于二氧化硅的DNA提取方法提供了一种独特的方法,依赖于二氧化硅和DNA相互作用的独特化学。带正电荷的二氧化硅颗粒在离心过程中与带负电荷的DNA结合,从而允许高质量的DNA产量和易于操作。由于其简单性和有效性,该市售技术已在诊断实验室中被广泛接受。为了验证提取的DNA,可以使用溴化乙锭或其他与DNA在UV光下反应的荧光染料在琼脂糖凝胶上电泳。通过计算260 nm和280 nm波长的吸光度来测量DNA的纯度。确定DNA纯度的最常见方法是A260/A280比率,对于优质DNA,应在1.7-2.0之间。较低的比率表明存在更多的污染物。荧光测量是确定DNA产量和浓度的另一种流行方法,它由于其广泛的可用性和比吸光度方法更高的灵敏度。也可以使用二苯胺(DPA)指示器确认DNA的存在,该指标涉及DNA化学水解。与分光光度计在600 nm处的吸光度强度也可以通过将DNA浓度与已知DNA浓度的标准曲线进行比较来确定DNA浓度。已开发和应用多种用于DNA提取的方法,包括用于传染病的护理核酸测试和人类DNA提取方法。方法的选择取决于DNA的特定应用和所需的质量。

减轻鸡的隔离应力
这项研究调查了(1)镜子或(2)主笔中的镜子和声音播放(即播放)是否可以减轻社会孤立的成年家养鸡的压力。三十只成年鸡参加了这项研究,在一个竞技场中连续三天进行了三分钟的社会隔离会议。每个鸡肉以半随机顺序暴露于每天的三个条件:(1)镜像,(2)播放和(3)控制。测试的视频记录是与压力相关的行为进行编码的,包括压力行为(即压力汇总和逃脱行为),警惕,喂养和探索。加上盟友,使用热成像来测量眼睛和梳子的表面温度。社会隔离引起了轻度的压力反应,这是通过降低的表面眼和梳理温度以及压力和警惕行为的表现所证明的。背部和镜子条件似乎都减少了压力行为,尽管镜子的效果在统计学上并不显着。播放可能模拟了一组平静的种类。警惕行为仍然不受影响。这些发现表明,在较小的镜子上播放可能会减轻社会孤立的成年鸡的某些与压力相关的行为。由于个体变异很高,未来的研究应探讨压力反应中个体差异的作用,以及反镜和播放的重复暴露以及其他环境变量的长期影响。

补充方法 DNA 分离 ...
补充方法 DNA 分离 使用自动 DNA 提取仪按照其协议(chemagic MSM I,PerkinElmer,美国马萨诸塞州沃尔瑟姆)从血液样本中分离 DNA。 使用试剂盒“EZ1&2 DNA Tissue”(Qiagen,德国希尔登)按照协议使用自动 DNA 提取仪 EZ1 Advanced XL(Qiagen)从羊膜细胞和绒毛中分离 DNA。 染色体微阵列(CMA) 使用 SureTaq DNA 标记试剂盒(Agilent,美国加利福尼亚州圣克拉拉)标记 DNA,并根据制造商的说明在 GenetiSure Cyto 4x180K CGH 微阵列(Agilent)上进行杂交。使用 InnoScan 910 AL 扫描仪(Innopsys,Carbonne,法国)扫描载玻片,并使用分析程序 Mapix(Innopsys)和 CytoGenomics 版本 5.1.2.1 和 5.3.0.14(Agilent)进行处理。使用参考基因组 GRCh38 评估数据。染色体分析和荧光原位杂交使用标准方法从肝素血样以及绒毛和羊膜细胞培养物中进行中期制备。简而言之,将来自肝素血样的细胞培养在含有植物血凝素作为有丝分裂原的 LymphoGrow 培养基(CytoGen,Sinn,德国)中,羊膜细胞培养在 Amniogrow plus 培养基(Cytogen,Sinn,德国)中,CVS 细胞培养在 Chang 培养基 D(Fujifilm,Minato,日本)中。固定后,将中期细胞滴到载玻片上,然后在 60 °C 下干燥过夜。使用核型分析系统 Ikaros(MetaSystems,德国阿尔特鲁斯海姆)通过 GTG 显带评估中期染色体的扩散情况。对于 FISH 分析,使用 Empire Genomics(美国纽约州布法罗)的探针 RP11-213E22-green 和 RP11-577D9-orange(7 号染色体)以及 RP11-358H10-green 和 RP11-241M19-orange(16 号染色体)。所有探针均按照制造商的说明使用。使用 Isis 数字成像系统(Metasystem Inc.,德国阿尔特鲁斯海姆)分析图像。 PCR 和测序 在适用的情况下,确认并进一步指定 OGM 分析中的断点,方法是使用 MinION 测序仪(Oxford Nanopore,英国牛津)进行第三代长距离测序,或使用 Hitachi 3500xL 基因分析仪(Thermo Fisher Scientific,美国马萨诸塞州沃尔瑟姆)进行 Sanger 测序。引物是根据 Dremsek et al., 2021 中描述的策略设计的。为了将引物定位得尽可能靠近预期的断点,OGM 数据和 CMA 数据都融入了其设计中。为了分析P1,进行了长距离PCR(连接点B/D*的扩增子:正向引物:5'-ggaggacaattttatcccccaggg-3'和反向引物:5'-gtgagccgtgagtttgccactat-3';连接点D*/B*的扩增子:正向引物:5'-tcgttgacggtgaaatgctacgt-3'和反向引物:5'-gcagataacggagtgaggaaggc-3')。PCR扩增后,使用引物 5' -acagctcactatagcagataggtgt- 3'、5' - ttgcatcaggaacatgtggacct- 3'、5' -ctggtcacaggcgcaaatcaaag- 3'、5' -gtcagcaaaggagagaagcagct- 3' 和 5' - gcaggttggctctttcccaagta- 3' 制备连接点 B/D* 的扩增子(大小为 4 kbp)进行 Sanger 测序。使用引物 5' -agggaaaagagatgtgtaaaatactgt- 3', 5' -agatgaggaagggcatctgac- 3', 5' -tcaagttgtcattgtggtgaatt- 3', 5' - cagatgccagcgctaagacgat- 3', 5' -aggttattacacacccctcct- 3', 5' -tgttcattatcactggccatcaga- 3', 5' -aaggggaaacctcctgctactct- 3', 5' - tgcacccactaacgtgtcatcta- 3', 5' -gggttggttccaagtctttgcta- 3', 5' -gctgaaactggatcccttcctta- 制备连接点 D*/B* 的扩增子(大小为 13 kbp),进行 Sanger 测序。 3'、5' -tgtagggacatggatgaaattgg- 3' 和 5' -ccaaacaccgcatattctcactc- 3'。为了分析 P3,进行了长距离 PCR(正向引物:5' -ttaccacgaaagagcaaacggtga- 3' 和反向引物:5' - aacgttattccttccagtcacccac- 3')。PCR 扩增后,根据制造商的方案(SQK -LSK109,Oxford Nanopore),制备 9 kbp 大小的扩增子以在 MinION 106D 流动槽上进行测序。对于家族检测,建立了 PCR,使用倒位特异性引物 5' -tgcctctgcttaataggaagttttgg- 3' 和 5' - cagccaataacgtgagtttaggagt- 3'(产生 1247 bp 扩增子),以及野生型引物 5' - cagccaataacgtgagtttaggagt- 3' 和 5' -ctgttgaaggacacaagctctggc- 3'(产生 778 bp 扩增子)(见 S.3)。MLPA 分析进行多重连接依赖性探针扩增 (MLPA) 以验证在 CMA 中检测到的增益并测试亲属的携带者状态。对于 MLPA,将 DNA 与探针杂交并根据制造商的说明进行扩增。使用 Hitachi 3500xL 基因分析仪(Thermo Fisher)对扩增的 DNA 进行片段分析,并使用 SeqPilot(JSI,德国埃滕海姆)分析程序处理数据。用于所呈现的临床病例的 MLPA 探针组是 P034-B2、P035-B1(P1)和 P216-C1(P3)(MRC-Holland,荷兰阿姆斯特丹)。5' -tgtagggacatggatgaaattgg- 3' 和 5' -ccaaacaccgcatattctcactc- 3'。为了分析 P3,进行了长距离 PCR(正向引物:5' -ttaccacgaaagagcaaacggtga- 3' 和反向引物:5' - aacgttattccttccagtcacccac- 3')。PCR 扩增后,根据制造商的方案(SQK -LSK109,Oxford Nanopore),制备 9 kbp 大小的扩增子以在 MinION 106D 流动池上进行测序。对于家族检测,建立了 PCR,使用倒位特异性引物 5' -tgcctctgcttaataggaagttttgg- 3' 和 5' - cagccaataacgtgagtttaggagt- 3'(产生 1247 bp 扩增子),以及野生型引物 5' - cagccaataacgtgagtttaggagt- 3' 和 5' -ctgttgaaggacacaagctctggc- 3'(产生 778 bp 扩增子)(见 S.3)。MLPA 分析进行多重连接依赖性探针扩增 (MLPA) 以验证在 CMA 中检测到的增益并测试亲属的携带者状态。对于 MLPA,将 DNA 与探针杂交并根据制造商的说明进行扩增。使用 Hitachi 3500xL 基因分析仪(Thermo Fisher)对扩增的 DNA 进行片段分析,并使用 SeqPilot(JSI,德国埃滕海姆)分析程序处理数据。用于所呈现的临床病例的 MLPA 探针组是 P034-B2、P035-B1(P1)和 P216-C1(P3)(MRC-Holland,荷兰阿姆斯特丹)。5' -tgtagggacatggatgaaattgg- 3' 和 5' -ccaaacaccgcatattctcactc- 3'。为了分析 P3,进行了长距离 PCR(正向引物:5' -ttaccacgaaagagcaaacggtga- 3' 和反向引物:5' - aacgttattccttccagtcacccac- 3')。PCR 扩增后,根据制造商的方案(SQK -LSK109,Oxford Nanopore),制备 9 kbp 大小的扩增子以在 MinION 106D 流动池上进行测序。对于家族检测,建立了 PCR,使用倒位特异性引物 5' -tgcctctgcttaataggaagttttgg- 3' 和 5' - cagccaataacgtgagtttaggagt- 3'(产生 1247 bp 扩增子),以及野生型引物 5' - cagccaataacgtgagtttaggagt- 3' 和 5' -ctgttgaaggacacaagctctggc- 3'(产生 778 bp 扩增子)(见 S.3)。MLPA 分析进行多重连接依赖性探针扩增 (MLPA) 以验证在 CMA 中检测到的增益并测试亲属的携带者状态。对于 MLPA,将 DNA 与探针杂交并根据制造商的说明进行扩增。使用 Hitachi 3500xL 基因分析仪(Thermo Fisher)对扩增的 DNA 进行片段分析,并使用 SeqPilot(JSI,德国埃滕海姆)分析程序处理数据。用于所呈现的临床病例的 MLPA 探针组是 P034-B2、P035-B1(P1)和 P216-C1(P3)(MRC-Holland,荷兰阿姆斯特丹)。

驱动的T细胞受体分离
抽象背景肿瘤浸润的T细胞可以通过创建免疫抑制环境来介导抗肿瘤免疫并促进肿瘤进展。这种双重作用在肝细胞癌(HCC)中特别相关,其特征是独特的微环境和当前免疫疗法的成功有限。目的,我们通过分析肿瘤,肝冲洗和肝脏淋巴结淋巴结来评估晚期HCC患者的T细胞反应,以了解尽管有免疫抑制环境,是否可以鉴定出反应性T细胞群体。设计从临床样品分离的T细胞测试了针对预测的新抗原的反应性。单细胞RNA测序用于评估抗原经验的T细胞的转录组和蛋白质组学特征。分离出表达4-1BB的新抗原反应性T细胞,并通过T细胞受体(TCR)测序来表征。结果生物信息学分析确定了来自七名患者的542个候选新抗原。选择了78种新抗原,以及来自HCC驱动器癌基因的11个热点靶标,以进行离体T细胞刺激。在共培养测定中证实了14个靶标的反应性,其中大多数反应性T细胞来自肝冲洗和淋巴结。肝冲洗源性T细胞具有细胞毒性效应子曲线的中心记忆和效应子记忆CD4+。相反,在排水淋巴结中,主要鉴定出具有耗尽的曲线的组织驻留记忆CD4+和CD8+ T细胞。结论这些发现提供了对HCC微环境内和周围的新抗原反应性T细胞的功能曲线的宝贵见解。T细胞,肿瘤淋巴结淋巴结可能是反应性T细胞和TCR的有前途的来源,可在HCC中进一步用于免疫疗法。

快速隔离广泛中和mab
SARS-COV-2大流行强调了对研究体液免疫反应并鉴定具有诊断性和治疗潜力的单克隆抗体(MAB)的迫切需求。记忆B细胞(MBC),对自适应免疫的关键,在抗原重新接合时会产生高亲和力抗体。虽然单细胞高通量测序已彻底改变了抗体曲目研究,但它具有关键的局限性:无法同时确定抗原结合特异性和免疫球蛋白基因序列,并且高资源需求限制了低回能设置中可访问性的限制。在这里,我们提出了一个具有成本效益的单细胞培养(SCC)平台,可以对人类MBC曲目进行全面分析,包括表位特异性响应,交叉反应性研究和MAB分离。使用SARS-COV-2康复和疫苗接种样品,我们优化了使用NB21馈线细胞,R848和IL-2刺激的MBC SCC,与散装培养物相比,具有高克隆效率和30倍富集的抗原特异性MBC。在592个孤立的mAb中,有52.7%的人对武汉菌株尖峰蛋白表现出特异性,靶向受体结合结构域(RBD)的27.9%,15.4%的N末端结构域(NTD)和56.7%的其他区域,可能是S2域。比较分析显示出不同的交叉反应性模式:所有抗尖峰mAB中有40.5%识别所有经过测试过的SARS-COV-2变体(Wuhan,Beta,Delta,Gamma和Omicron Ba.2),而29.6%的人仅显示四个变体,不包括Omicron Ba.2,仅显示了四个变体的认可;还鉴定出56个单应力反应性mAb(14.9%)。所需的克隆以进行重组单键产生。值得注意的是,所有筛选和中和测定都直接用培养上清液进行,从而消除了对大规模测序和转染的需求。SCC平台还启用了无偏的免疫球蛋白曲目分析,揭示了收敛的V区域重排,包括公共V3-30和V3-53/V3/V3-66抗体与先前的SARS-COV-2研究一致。在伪病毒中和测定中验证了两个具有广泛中和潜力的公共靶向克隆。这个简化的平台在7天之内提供了同时提供抗原特异性的MAB隔离,V区域测序和功能研究,从而赋予低资源环境中的研究人员能够解决全球健康不平等,并增强对未来大流程学的准备。

miso:微流体蛋白隔离能够从单个细胞集落
单个粒子冷冻EM可以通过将嵌入在纳米厚的玻璃体冰中的几百万个纯化的蛋白质颗粒可视化到几百万纯化的蛋白质颗粒,从而重建蛋白质的接近原子或什至原子分辨率3D蛋白质。这对应于纯化蛋白质的皮克图,这些蛋白质可以从几千个细胞中分离出来。因此,Cryo-Em具有最敏感的分析方法之一,该方法提供了高分辨率蛋白质结构作为读数。实际上,准备低温EM网格需要超过一百万倍的起始生物材料。为了缩小差距,我们开发了一种微分离(MISO)方法,该方法将基于微流体的蛋白质纯化与冷冻EM网格制剂相结合。我们验证了可溶性细菌和真核膜蛋白的方法。我们表明,Miso可以从一个微克的靶蛋白微克开始,并在几个小时内从细胞到冷冻EM网格。这将纯化缩短了几百到几千倍,并为迄今无法访问的蛋白质的结构表征打开了可能性。

药房解决孤独和社会孤立问题 (PALS ...
提高药房员工的技能,让他们了解药房工作场所内的孤独感,也可以节省成本。在澳大利亚,大约 37% 的澳大利亚劳动力感到孤独。14 药房行业的统计数据尚不清楚,但工作场所的孤独感与工作绩效下降、工作场所错误增加、工作满意度降低、雇主与雇员关系不佳、倦怠风险以及心理健康和幸福感不佳有关——所有这些都可能给员工和雇主带来成本 15 。在美国,因孤独而导致的压力相关旷工每年给雇主造成的损失估计为 1540 亿美元。16 报告《孤独给英国雇主带来的成本》* 估计英国雇主每年因孤独而损失 25 亿英镑,其中包括私营部门雇主的 21 亿英镑。17 澳大利亚缺乏与工作场所相关的孤独成本数据,但积极主动地解决药房员工的工作场所孤独感将有助于保护这支关键的医疗保健队伍,并减轻经济负担。

隔离,识别,分子表征
摘要本研究报告了奶牛场的流产,腹泻和牛奶生产急剧下降。该农场通常用进口疫苗接种了针对BVDV的疫苗,其中含有典型的Pestiviruses菌株(BVDV-1和BVDV-2)。从流产的母牛和显示持续性腹泻的奶牛中收集了总共13个血清样品,5个阴道排放样品和5个粪便样品。使用PCR筛选所有样品的潜在微生物原因(病毒或细菌)。在测试的23个样品中,只有一个阴道放电样品在预期的288 bp下产生了阳性的PCR结果。设计的引物是对基于5'-UTR的RTPCR测定法的高灵敏度,用于检测Pestiviruses。将PCR产品发送进行序列分析,并将结果提交给GenBank登录号#OR425033,并设计为GERD/VSVRI/PESTI-GIRAFFE/2022。然后通过三个连续的盲传中成功地在MDBK细胞中成功分离并传播该病毒。在病毒后接种后2-3天观察到了一种明显的细胞质效应(CPE),其特征是感染后72小时,其特征是液泡,细胞舍入和簇形成。pcr均在每个段落上进行,并以预期的大小给出了一个特定的频带。通过序列比对和系统发育分析的进一步分析表明,分离株与Pestivirus长颈鹿密切相关,尤其是Pestivirus PG-2。这标志着该菌株在埃及的检测,隔离和表征的第一个记录。因此,这种流行是由埃及记录的新引入的菌株引起的。因此,进口的疫苗无法提供保护,需要更新当地的疫苗以包括此Pestivirus菌株。关键字:Pestivirus PG-2,PNS,MDBK,5`UTR,CPE,系统发育分析,PCR,BDV,