
XiaoMi-AI文件搜索系统
World File Search Systemactivates

衰老黑素细胞的信号传导过度激活头发生长
x ia at jie wy 1.2.3,#,r a l a l a l a l a l a l a l a l a l a 1.2.3,ann e Q. ph a 4,kusuk e y a s a g a g a g a g a g a a g a g a g a g a g a g a g a g a g a g a a s i i i i s ica l. f,sh,sh,sh a g 1.6,赢得了OH 7.8,shoq。 j 9. 9.10,soh ail j a d 5,chi eu n 1.2.2.11.12,trum a n k t nguy n 1.2,h和d udup 1.2,n 1.2,n 1.2,n ith shu udup sh and n ith shu udup sh and g r 1.2.13,r i z h 1,2.3,r i z h 1,2.3,k e v n H. Nobuh,nobuh至15 15,v a e s ss a M. s cfon e 2,gu a s a s a 2,k a a s a s a s a s a s a s a s a s a s a s a s a s a s a s a s a s ar,x oy是2。在n F. 1.6,Zh e,e,3.3.6.6.9,1.3.3.6.6.9,t a a a a a a a e eSco 4,a nd K. g a s a s a s a s a s a s a s a s a s a s a s s a s s a s s a s a s a s a s a s a s a s a s a s a s a s a s a s a s a s a s a s,j i 14.25,m a x m a x m a x m v。

内源性逆转录病毒表达在间皮瘤发育的实验小鼠模型中激活I型干扰素信号
在间皮瘤发育实验模型中,早期事件包括双链RNA(DSRNA)中编辑水平的增加。我们假设内源性逆转录病毒(ERV)的表达有助于DSRNA形成和I型干扰素信号传导。与非肿瘤样品相比,肿瘤的 ERV和干扰素刺激的基因(ISG)表达明显更高。 12个肿瘤特异性ERV(“ Mesoerv1-12”)被鉴定出来并通过qPCR在小鼠组织中验证。 与间皮瘤细胞相比,小鼠胚胎成纤维细胞(MEF)的“ Mesoerv1-12”表达较低。 “ Mesoerv1-12”水平通过脱甲基化剂5-Aza-2' - 脱氧胞苷的处理显着提高,并伴随着DSRNA和ISGS的水平升高。 与MEF相比,间皮瘤细胞中的基底ISGS表达更高,并且通过阻断IFNAR1和沉默的MAVS,JAK抑制剂r梭替尼显着降低了。 “ Mesoerv7”启动子在5-Aza-CDR处理后,与假小鼠组织以及间皮瘤细胞以及MEF细胞和MEF相比,在石棉暴露的暴露中被脱甲基化。 这些观察结果发现了石棉诱导的间皮瘤的新颖方面,从而导致ERV表达因启动子去甲基化而引起,并且与DSRNA水平的增加和IFN型信号传导的激活相似。 这些特征对于早期诊断和治疗很重要。ERV和干扰素刺激的基因(ISG)表达明显更高。12个肿瘤特异性ERV(“ Mesoerv1-12”)被鉴定出来并通过qPCR在小鼠组织中验证。与间皮瘤细胞相比,小鼠胚胎成纤维细胞(MEF)的“ Mesoerv1-12”表达较低。“ Mesoerv1-12”水平通过脱甲基化剂5-Aza-2' - 脱氧胞苷的处理显着提高,并伴随着DSRNA和ISGS的水平升高。与MEF相比,间皮瘤细胞中的基底ISGS表达更高,并且通过阻断IFNAR1和沉默的MAVS,JAK抑制剂r梭替尼显着降低了。“ Mesoerv7”启动子在5-Aza-CDR处理后,与假小鼠组织以及间皮瘤细胞以及MEF细胞和MEF相比,在石棉暴露的暴露中被脱甲基化。这些观察结果发现了石棉诱导的间皮瘤的新颖方面,从而导致ERV表达因启动子去甲基化而引起,并且与DSRNA水平的增加和IFN型信号传导的激活相似。这些特征对于早期诊断和治疗很重要。
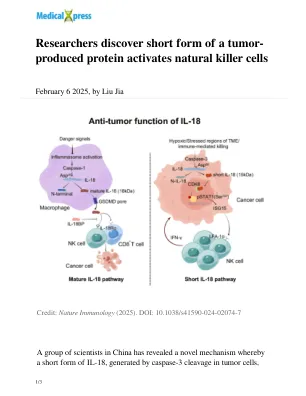
产生的蛋白质激活天然杀伤细胞
在这项研究中,研究人员专注于IL-18。他们发现肿瘤细胞可以通过caspase-3裂解产生新型的IL-18形式,该裂解与传统的成熟IL-18途径无关。与成熟的IL-18不同,这种短形式不会退出细胞,而是进入细胞核,在该细胞核中促进了STAT1和ISG15分泌的磷酸化,从而增强了NK细胞抗肿瘤功能。

cRISPR靶向H3K4ME3激活基因表达并解锁拟南芥中的丝粒跨界重组
。cc-by-nc-nd 4.0国际许可证。根据作者/资助者提供了预印本(未经同行评审的认证)提供的,他已授予Biorxiv的许可证,以在2025年2月8日发布的此版本中在版权所有者中显示预印本。 https://doi.org/10.1101/2025.02.07.636860 doi:Biorxiv Preprint

一种工程化的抗独特型抗体衍生的杀伤肽(KP)早期激活猪炎症单核细胞、CD3+CD16+自然杀伤T细胞和C
本研究评估了用基于抗独特型抗体(功能上模拟酵母杀伤毒素)的工程杀伤肽 (KP) 处理的猪免疫细胞的表型和细胞因子分泌的早期调节。使用猪生殖与呼吸综合征病毒 (PRRSV) 和猪圆环病毒 2 型 (PCV2) 作为体外抗原研究了 KP 对特异性免疫的影响。用 KP 和杂乱肽刺激健康猪的外周血单核细胞 (PBMC) 20 分钟、1、4 和 20 小时或保持不刺激。使用流式细胞术和 ELISA 分析细胞。使用相同的时间段进行 KP 预孵育/共孵育,以使用 ELISPOT 确定对病毒回忆干扰素-γ (IFN- γ ) 分泌细胞 (SC) 频率和单细胞 IFN- γ 生产力的影响。KP 诱导早期剂量依赖性转变至促炎性 CD172 α + CD14 +high 单核细胞和增加 CD3 + CD16 + 自然杀伤 (NK) T 细胞。KP 触发经典 CD4 − CD8 αβ + 细胞毒性 T 淋巴细胞 (CTL) 和双阳性 (DP) CD4 + CD8 α + Th 记忆细胞 (CD4 + CD8 α +low CD8 β +low) 上的 CD8 α 和 CD8 β 表达。一部分 DP 细胞也表达高水平的 CD8 α 。已鉴定的两种 DP CD4 + CD8 α +高 CD8 β +低/+高 CTL 亚群与肿瘤坏死因子 α (TNF- α ) 和 IFN- γ 分泌有关。KP 显著增强了 PRRSV 1 型和 PCV2b 特异性 IFN- γ SC 的反应性和交叉反应性。结果表明 KP 在刺激 Th1 偏向免疫调节方面有效,并支持将 KP 作为免疫调节剂或疫苗佐剂进行研究。

作者校正:通过西班牙埃尔米隆洞穴的晚更新世,对人类和食肉动物持久性的沉积古代DNA观点
这是接受出版的同行评审纸的PDF文件。尽管未经编辑,但内容已受到初步格式。自然正在为排版纸的早期版本作为我们的作者和读者的服务。文本和数字将在本文以最终形式发表之前进行复制和证明审查。请注意,在生产过程中可能会发现可能影响内容的错误,并且所有法律免责声明都适用。

组蛋白去乙酰化酶抑制剂 Largazole 抑制 SP1 和 BRD4,使一组超级增强子失活,并导致有丝分裂染色体错位
组蛋白去乙酰化酶抑制剂已被研究作为癌症和其他疾病的潜在治疗剂。已知 HDI 可促进组蛋白乙酰化,从而导致开放染色质构象并通常增加基因表达。在之前的研究中,我们报告了一组基因,特别是那些由超级增强子调控的基因,可以被 HDAC 抑制剂拉格唑抑制。为了阐明拉格唑抑制基因的分子机制,我们进行了转座酶可及染色质测序、ChIP-seq 和 RNA-seq 研究。我们的研究结果表明,虽然拉格唑治疗通常会增强染色质的可及性,但它会选择性地降低一组超级增强子区域的可及性。这些基因组区域在拉格唑存在下表现出最显著的变化,富含 SP1、BRD4、CTCF 和 YY1 的转录因子结合基序。 ChIP-seq 分析证实 BRD4 和 SP1 在染色质上各自位点的结合减少,特别是在调节基因(如 ID1、c-Myc 和 MCM)的超级增强子上。拉格唑通过抑制 DNA 复制、RNA 加工和细胞周期进程发挥作用,部分是通过抑制 SP1 表达来实现的。shRNA 消耗 SP1 可模拟拉格唑的几种关键生物学效应并增加细胞对该药物的敏感性。针对细胞周期调控,我们证明拉格唑通过干扰中期染色体排列来破坏 G/M 转换,这种表型在 SP1 消耗时也观察到。我们的结果表明,拉格唑通过抑制超级增强子上的 BRD4 和 SP1 发挥其生长抑制作用,导致细胞抑制反应和有丝分裂功能障碍。

TIR 信号激活细菌中的 caspase 样免疫
胱天蛋白酶家族的蛋白酶以及 Toll/白细胞介素-1 受体 (TIR) 结构域蛋白在人类的先天免疫和调节细胞死亡中发挥着核心作用。在本研究中,我们描述了一种由胱天蛋白酶样蛋白酶和 TIR 结构域蛋白组成的细菌免疫系统。我们发现,一旦 TIR 蛋白识别出噬菌体入侵,它就会产生以前未知的免疫信号分子 ADP-环[N7:1′′]-核糖 (N7-cADPR)。这种分子特异性地激活细菌胱天蛋白酶样蛋白酶,然后无差别地降解细胞蛋白以阻止噬菌体复制。TIR-胱天蛋白酶防御系统(我们称之为 IV 型 Thoeris)在细菌中含量丰富,可有效防止噬菌体繁殖。我们的研究突出了 TIR 产生的免疫信号分子的多样性,并表明由胱天蛋白酶家族蛋白酶调节的细胞死亡是一种古老的先天免疫机制。

小麦串联激酶传感器激活NLR助手以触发免疫力
1植物科学计划,生物与环境科学与工程部(BESE),阿卜杜拉科学技术大学(KAST)国王;沙特阿拉伯的塔瓦尔。2 Csiro农业和食物;堪培拉,澳大利亚澳大利亚首都地区。3福建泰旺作物害虫的生态控制国家主要实验室,遗传学教育部的主要实验室,繁殖和多种作物的多种利用,植物免疫中心,福建农业和林业大学;中国富州。4 Bioscience计划,Smart Health Initiative,Bese,Kaust;沙特阿拉伯的塔瓦尔。5明尼苏达大学植物病理学系;美国明尼苏达州圣保罗。 6植物科学系,自由州大学;布隆方丹,南非。 *相应的作者。 电子邮件:peter.dodds@csiro.au,brande.wulff@kaust.edu.sa†这些作者为这项工作做出了同样的贡献。 摘要:大多数植物抗性基因编码膜锚定的受体样蛋白或细胞内核苷酸结合和富含亮氨酸的重复(NLR)受体。 在小麦和大麦中,串联激酶(TKS)已成为新的抗药性决定因素。 了解小麦茎锈蚀蛋白SR62 TK的作案手法,我们鉴定了两个遗传相互作用者 - SR62 TK功能所需的宿主基因和相应的真菌AVRSR62效应子。 我们发现SR62基因座是由编码SR62 TK和NLR(SR62 NLR)的挖掘模块组成的。 AVRSR62与SR62 TK的N末端激酶结合。5明尼苏达大学植物病理学系;美国明尼苏达州圣保罗。6植物科学系,自由州大学;布隆方丹,南非。 *相应的作者。 电子邮件:peter.dodds@csiro.au,brande.wulff@kaust.edu.sa†这些作者为这项工作做出了同样的贡献。 摘要:大多数植物抗性基因编码膜锚定的受体样蛋白或细胞内核苷酸结合和富含亮氨酸的重复(NLR)受体。 在小麦和大麦中,串联激酶(TKS)已成为新的抗药性决定因素。 了解小麦茎锈蚀蛋白SR62 TK的作案手法,我们鉴定了两个遗传相互作用者 - SR62 TK功能所需的宿主基因和相应的真菌AVRSR62效应子。 我们发现SR62基因座是由编码SR62 TK和NLR(SR62 NLR)的挖掘模块组成的。 AVRSR62与SR62 TK的N末端激酶结合。6植物科学系,自由州大学;布隆方丹,南非。*相应的作者。电子邮件:peter.dodds@csiro.au,brande.wulff@kaust.edu.sa†这些作者为这项工作做出了同样的贡献。摘要:大多数植物抗性基因编码膜锚定的受体样蛋白或细胞内核苷酸结合和富含亮氨酸的重复(NLR)受体。在小麦和大麦中,串联激酶(TKS)已成为新的抗药性决定因素。了解小麦茎锈蚀蛋白SR62 TK的作案手法,我们鉴定了两个遗传相互作用者 - SR62 TK功能所需的宿主基因和相应的真菌AVRSR62效应子。我们发现SR62基因座是由编码SR62 TK和NLR(SR62 NLR)的挖掘模块组成的。AVRSR62与SR62 TK的N末端激酶结合。这种触发了C末端激酶的位移,允许其募集SR62 NLR以激活免疫反应。了解这种两分量抗性复合物的机制将有助于工程和繁殖,以实现耐用性。

HB-EGF激活EGFR,以诱发癫痫发作后小鼠海马中的反应性神经干细胞
海马癫痫发作模仿中叶颞叶癫痫会导致小鼠成年神经源性小裂的严重破坏。癫痫发作会引起神经干细胞的切换为反应性表型(反应性神经干细胞,反应-NSCS),其特征是以多种肥大的形态,大规模激活进行有丝分裂,对称分裂和最终分化为反应性星形胶质细胞。结果,神经发生在长期存在。在这里,使用中颞叶癫痫的小鼠模型,我们表明表皮生长因子受体(EGFR)信号传导途径是诱导React-NSCS的关键,并且其抑制作用对Neurenopenic元素产生了有益的影响。我们表明,在神经干细胞中EGFR信号途径的两个激活剂中,都会在神经干细胞的EGFR信号途径的两种激活剂中,通过单次公公中注射海马内注射癫痫发作后的最初几天。施用EGFR抑制剂Gefinib是IV临床期IV中的化学治疗性,可防止React-NSC的诱导并保留神经发生。